
Qué significa tensión mecánica cuando hablamos de hipertrofia
La tensión mecánica describe la solicitación que recibe un tejido cuando transmite fuerza. En el músculo, esa solicitación alcanza las fibras, sus estructuras internas y sus conexiones con el entorno. Para comprender su relación con la hipertrofia conviene seguir ese recorrido, desde una tarea visible hasta una respuesta celular que no podemos observar directamente.
Levantar una resistencia exige producir fuerza, pero la masa indicada en una mancuerna no expresa por sí sola cuánto soporta cada fibra. Entre el objeto y la célula intervienen la posición de las articulaciones, los brazos de momento, los músculos que comparten el movimiento y la activación necesaria para ejecutarlo. Por eso, «tensión mecánica» no equivale simplemente a «mucho peso». También resulta impreciso utilizarla como sinónimo de esfuerzo percibido, congestión o tiempo que dura una repetición.
En el lenguaje del entrenamiento se emplea tensión para referirse, de manera amplia, a la fuerza desarrollada o soportada por las estructuras musculares. En mecánica de materiales, en cambio, el esfuerzo normal expresa fuerza por unidad de superficie. Ambos usos pueden resultar útiles si se identifica qué magnitud se está describiendo. Una explicación que mezcla kilogramos, newtons y pascales sin distinguirlos pierde justamente la precisión que pretende aportar.
Schoenfeld sitúa la carga mecánica como un componente central del estímulo de crecimiento y dedica una discusión específica a cómo se transforma en señales celulares. Su manual también reconoce que la magnitud, la duración y el tipo de solicitación no son intercambiables. La aplicación práctica comienza, por tanto, con una pregunta concreta: ¿qué tejido está produciendo o transmitiendo fuerza en esta tarea y bajo qué condiciones? (Schoenfeld, 2021, pp. 30–32).
De la carga externa a la fuerza que transmite el músculo
La carga externa pertenece a la tarea; la fuerza muscular pertenece a la respuesta del organismo. Relacionarlas exige considerar la geometría del movimiento y la coordinación entre músculos. Esta distinción permite entender por qué dos ejercicios con una resistencia semejante pueden imponer exigencias diferentes, y por qué cambiar de posición modifica una misma tarea.
En un movimiento lento y simplificado, una resistencia genera un momento respecto a la articulación. Los músculos y otras estructuras deben aportar momentos que permiten sostener o modificar esa posición. Si el brazo de momento externo aumenta, la demanda de momento cambia aunque la masa del objeto permanezca igual. En un movimiento acelerado también interviene la dinámica: la descripción ya no puede reducirse al peso y a una fotografía de la postura.
La fuerza requerida al conjunto de músculos tampoco se reparte de forma automáticamente uniforme. Un músculo puede actuar como agonista, otro contribuir a estabilizar y otro producir un momento opuesto. La coordinación, los antecedentes del sujeto y las restricciones del ejercicio condicionan ese reparto. Una fotografía o una cifra de carga externa no resuelven el problema de estimar las fuerzas individuales; para eso hacen falta modelos, mediciones y supuestos explícitos.
Este razonamiento ayuda a interpretar las progresiones. Añadir resistencia es una forma de aumentar la exigencia, pero modificar el apoyo, el recorrido o la posición puede alterar el problema mecánico. La decisión depende del propósito: aprender un movimiento, desarrollar fuerza en un rango concreto o organizar un estímulo de hipertrofia no son objetivos idénticos. Los manuales de entrenamiento de fuerza distinguen estas relaciones entre ejercicio, coordinación y adaptación, sin convertir el número escrito en la carga en una descripción completa del estímulo interno (Zatsiorsky et al., 2021, caps. 2–4).
Fuerza, esfuerzo mecánico y momento: tres magnitudes distintas
Una explicación cuantitativa sencilla puede aclarar el vocabulario sin fingir que conocemos las fuerzas de un músculo humano. Fuerza, esfuerzo y momento responden a preguntas diferentes. El valor pedagógico del cálculo consiste en mostrar sus unidades y sus supuestos, y en reconocer qué información falta cuando se intenta trasladarlo a una situación real.
La fuerza se expresa en newtons. El esfuerzo normal medio de un elemento ideal sometido a tracción axial se obtiene dividiendo la fuerza por el área perpendicular sobre la que actúa. El momento de una fuerza respecto a un eje depende, además, de la distancia perpendicular entre ese eje y la línea de acción. No es correcto reemplazar una magnitud por otra porque las tres aparezcan durante el mismo ejercicio.
Ejemplo didáctico hipotético. Consideremos un elemento homogéneo, con una sección perpendicular de 100 milímetros cuadrados, sometido a una fuerza axial de 100 newtons. Su esfuerzo normal medio sería un millón de pascales. Si otra fuerza de 100 newtons actuara con un brazo perpendicular de 0,20 metros respecto a un eje, su momento sería de 20 newton metro. Son dos modelos diferentes, no una medición del bíceps ni de sus costámeros.
En la primera expresión, el área equivale a 0,0001 metros cuadrados y se supone una distribución uniforme para calcular un valor medio. En la segunda, se considera una fuerza perpendicular al brazo indicado y un problema plano. Un músculo posee arquitectura, tejidos conectivos, regiones y cambios de geometría que estos modelos no representan. Además, el área anatómica y el área fisiológica de sección transversal no son conceptos idénticos. El cálculo sirve para ordenar el significado de las unidades; no permite asignar un valor local de tensión a cada fibra durante una repetición.
La fuerza se transmite en sentido longitudinal y lateral
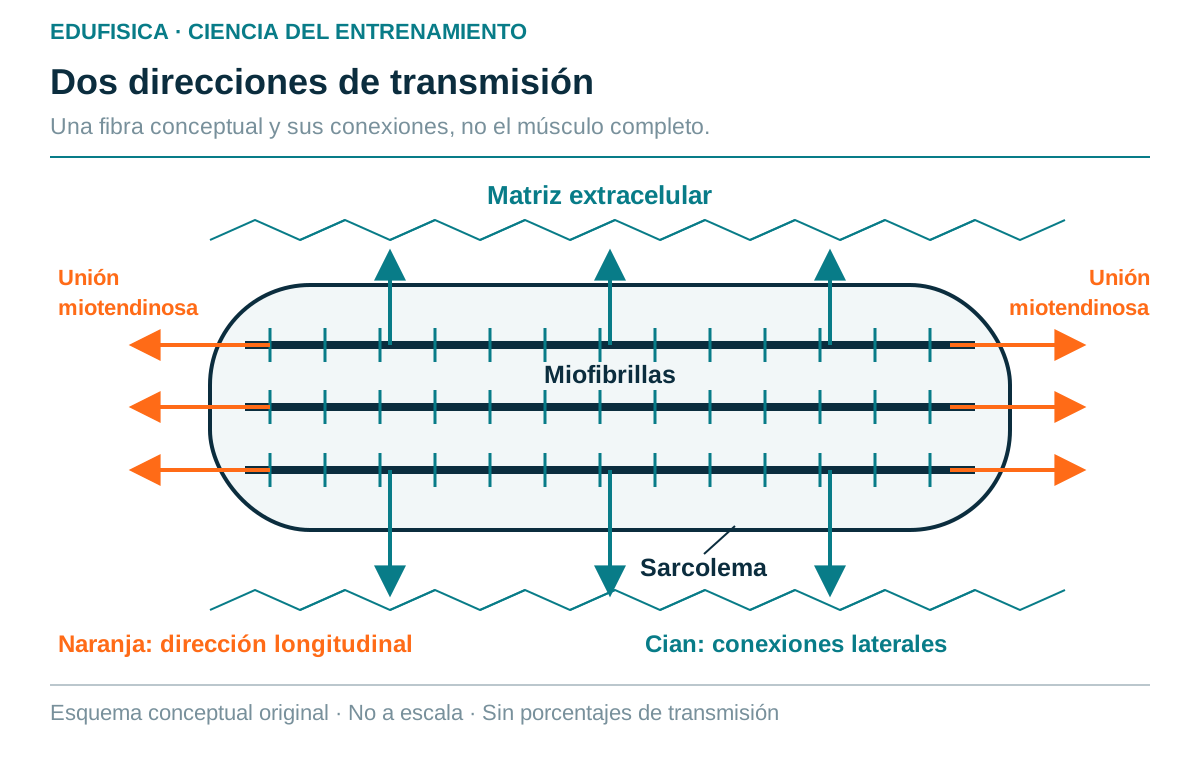
El músculo no funciona como una colección de cuerdas aisladas que llegan intactas de un tendón al otro. Las fibras se relacionan con un entramado conectivo y con estructuras que vinculan su interior a la membrana. Esa organización permite considerar la transmisión longitudinal y lateral de fuerza como componentes de un mismo sistema mecánico.
La transmisión longitudinal sigue, de manera simplificada, el eje de las estructuras contráctiles y sus conexiones hacia las uniones miotendinosas. La transmisión lateral involucra conexiones hacia el sarcolema y la matriz extracelular. Sarcolema es el nombre de la membrana de la fibra muscular; matriz extracelular designa el entorno de proteínas y otras sustancias que organiza y sostiene a las células. La distinción entre ambas direcciones ayuda a comprender la función de los costámeros.
No se trata de dos rutas que el deportista pueda elegir voluntariamente. Tampoco significa que exista un porcentaje lateral fijo aplicable a cualquier músculo y movimiento. El reparto depende de la organización y las condiciones del tejido. Desde una perspectiva docente, dibujar ambas direcciones permite corregir una imagen demasiado lineal: la producción de fuerza ocurre dentro de una arquitectura que también conecta regiones y distribuye solicitaciones.
Schoenfeld describe esta conexión entre transmisión de fuerza y mecanotransducción antes de presentar las rutas moleculares. Es un orden explicativo útil: primero se comprende qué estructuras reciben la solicitación y después se pregunta cómo esa información modifica la actividad celular. En consecuencia, un dibujo de la fibra debería incluir el entorno extracelular y la membrana, en lugar de presentar únicamente los filamentos contráctiles como si el resto fuera un envoltorio sin función (Schoenfeld, 2021, pp. 31–32).
Qué son los costámeros y qué conectan
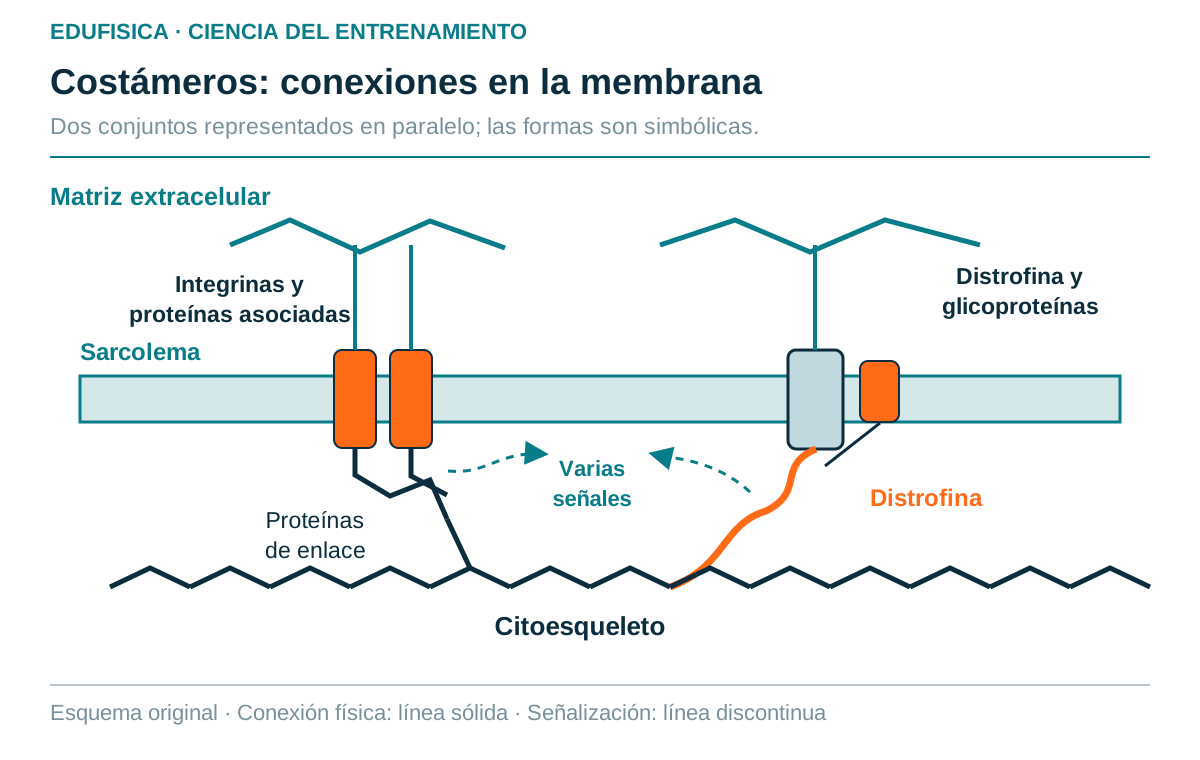
Los costámeros son organizaciones de proteínas asociadas a la membrana de las fibras musculares que conectan estructuras internas con la matriz extracelular. Su interés no se limita al soporte físico: ocupan una posición desde la cual las solicitaciones mecánicas pueden relacionarse con señales celulares. Sin embargo, no constituyen un único receptor ni una pieza aislada.
Para ubicarlos, pensemos en una fibra con sus miofibrillas, su citoesqueleto y su membrana. Los costámeros se relacionan espacialmente con la organización sarcomérica, especialmente con regiones correspondientes a las líneas Z. Entre sus sistemas de conexión se encuentran complejos asociados a integrinas y al complejo de distrofina y glicoproteínas. Estos nombres identifican familias y ensamblajes moleculares, no ejercicios ni técnicas de entrenamiento.
Una integrina atraviesa la membrana y participa en la relación entre componentes extracelulares e intracelulares. Proteínas de enlace contribuyen a organizar esa conexión. La distrofina pertenece a otro complejo que también vincula el citoesqueleto y la membrana con el entorno. Presentarlos en paralelo resulta más fiel que dibujar una cadena única que obliga a toda señal a pasar por un solo punto. El esquema sigue siendo conceptual: no representa proporciones ni una imagen microscópica.
La revisión de Boppart y Mahmassani destaca la integrina α7β1 en las uniones miotendinosas y los costámeros. A la vez, advierte que varios vínculos propuestos entre integrinas, señalización y crecimiento siguen incompletamente establecidos. La localización de una proteína y su respuesta al ejercicio apoyan su relevancia, pero no demuestran, por sí solas, que sea el sensor exclusivo o la causa suficiente de hipertrofia. Esa precaución mejora la explicación de los costámeros sin restar importancia a su función estructural (Boppart & Mahmassani, 2019).
Mecanotransducción: cómo una solicitación modifica la actividad celular
La mecanotransducción reúne los procesos mediante los cuales una información mecánica se relaciona con cambios bioquímicos y celulares. En el músculo permite conectar la carga con decisiones sobre síntesis, degradación y organización del tejido. No describe una conversión instantánea de cada repetición en músculo nuevo, ni una respuesta que ocurra igual en cualquier situación.
El término transducción implica un cambio en la forma de la información. Una deformación o una fuerza transmitida puede modificar el estado de estructuras sensibles a esa solicitación y relacionarse con la actividad de proteínas señalizadoras. A partir de ahí pueden cambiar procesos de traducción de proteínas, expresión de genes o reorganización estructural. Las respuestas se coordinan con la disponibilidad energética, los nutrientes y el estado previo de la célula.
El manual de Schoenfeld incluye, entre los candidatos implicados, componentes de la membrana, del citoesqueleto y de las estructuras sarcoméricas. También menciona hipótesis sobre la relación de la deformación nuclear con señales de crecimiento. El punto común no es que todas las estructuras hagan lo mismo, sino que la célula dispone de diferentes lugares donde una solicitación puede adquirir significado biológico. La contribución exacta de cada uno requiere contrastación experimental (Schoenfeld, 2021, pp. 31–32).
Una comparación original útil para la enseñanza consiste en separar recepción, procesamiento y resultado. Recibir una señal no equivale a producir una respuesta final predeterminada; procesarla tampoco significa que desaparezcan otras influencias. Esta distinción evita explicar la hipertrofia como una secuencia automática de cinco casillas. Las flechas de un organizador gráfico indican relaciones conceptuales, mientras que los límites y las rutas alternativas recuerdan que el tejido integra condiciones simultáneas.
Por qué no hay un solo «sensor de hipertrofia»
La investigación busca estructuras capaces de detectar o transmitir información mecánica, pero una lista de candidatos no equivale a una clasificación definitiva de sensores. Algunos componentes cumplen funciones estructurales y de señalización al mismo tiempo. Reconocer esa superposición permite interpretar los experimentos sin atribuir todo el crecimiento a una molécula que cambió después del ejercicio.
La titina es una proteína sarcomérica de gran tamaño vinculada a la organización y las propiedades mecánicas del sarcómero. Las integrinas conectan la célula con la matriz; otros candidatos participan en canales, membranas o relaciones con el núcleo. Es razonable investigar estas estructuras porque reciben información mecánica, pero sus funciones no son intercambiables. Una proteína puede contribuir a sostener el sistema, a transmitir fuerza y a modificar señalización sin ser responsable de todo el proceso.
También hay que distinguir «se modifica con la carga» de «es indispensable para crecer». La primera frase describe una asociación observada bajo ciertas condiciones. La segunda exige experimentos capaces de alterar el componente y examinar el resultado, considerando compensaciones y efectos sobre la viabilidad del tejido. Si eliminar una proteína deteriora la estructura muscular, la reducción de crecimiento posterior no identifica necesariamente una función específica como sensor.
La revisión de Roberts y colaboradores reúne mecanismos de sobrecarga y señala desacuerdos que permanecen abiertos. Su discusión relaciona mTORC1, capacidad de traducción, síntesis proteica y contribuciones celulares, pero también presenta procesos que no encajan en una única vía. Esa lectura respalda una red explicativa con distintos niveles de evidencia. En la práctica, conocer candidatos mecanosensibles ayuda a comprender la adaptación; no permite elegir un ejercicio que «active exclusivamente» una proteína concreta (Roberts et al., 2023).
Señalización, síntesis proteica y crecimiento no son la misma medición
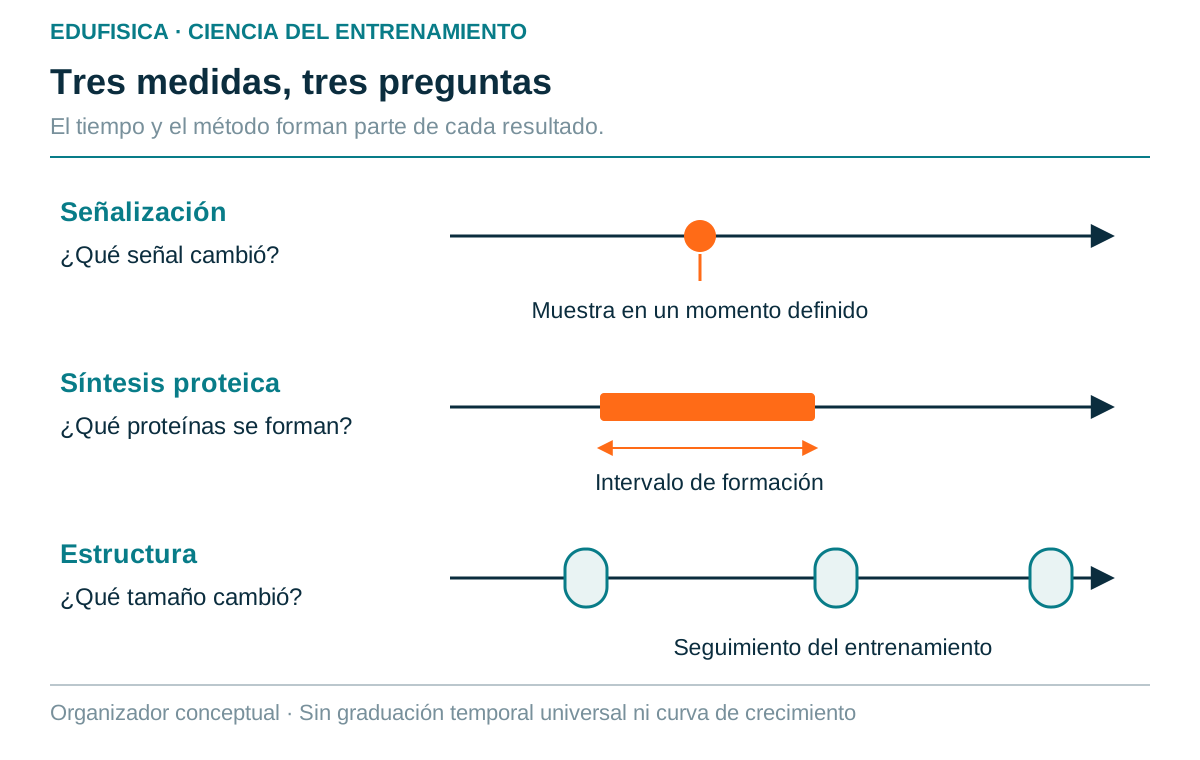
Una respuesta molecular, un aumento de síntesis proteica y un cambio mantenido del tamaño muscular pertenecen a escalas distintas. Se relacionan, pero cada una requiere su propia observación. Separarlas permite comprender por qué una investigación aguda resulta valiosa para estudiar mecanismos sin demostrar automáticamente cuál programa producirá más hipertrofia después de varias semanas.
La señalización incluye cambios en el estado o la localización de proteínas que regulan procesos celulares. La síntesis proteica describe la formación de proteínas nuevas y puede evaluarse mediante técnicas específicas. La hipertrofia, por su parte, requiere estudiar el crecimiento de fibras o tejido muscular a lo largo del tiempo. No toda proteína sintetizada queda destinada a aumentar la cantidad de material contráctil; el tejido también mantiene y reemplaza componentes.
mTORC1 ocupa un lugar importante en la regulación de la síntesis proteica, pero no debe representarse como un marcador que pronostica por sí solo el crecimiento de una persona. La disponibilidad de nutrientes y las condiciones energéticas forman parte de la regulación. Además, observar fosforilación de una proteína en una muestra y un momento concretos no equivale a medir toda la actividad de una red molecular durante una semana (Schoenfeld, 2021, pp. 33–38).
En una comparación docente hipotética, dos investigaciones pueden estudiar el mismo ejercicio y responder preguntas diferentes: una obtiene muestras poco después de la sesión; otra evalúa el tamaño muscular antes y después de un periodo de entrenamiento. La primera ayuda a formular o contrastar mecanismos. La segunda se aproxima al resultado crónico, aunque tampoco revela por completo cómo ocurrió. Comparar sus conclusiones requiere respetar la pregunta, la medida y el tiempo de cada estudio.
Tensión activa, tensión pasiva y longitud muscular
La fuerza de un músculo puede incluir contribuciones de las estructuras contráctiles activadas y de componentes que se oponen al alargamiento. Estas contribuciones cambian con la longitud y las condiciones de la tarea. Hablar de tensión activa y pasiva permite distinguirlas, siempre que no se confunda una explicación mecánica con una predicción directa de crecimiento.
La tensión activa se vincula a la interacción de filamentos contráctiles bajo activación. La contribución pasiva se relaciona con estructuras que ofrecen resistencia cuando el sistema se alarga. En una tarea real ambas pueden coexistir. No existe una proporción constante que permita dividir la fuerza total del ejercicio en dos cantidades universales. La arquitectura y el rango estudiado condicionan la relación (Zatsiorsky et al., 2021, cap. 2).
De aquí surge una distinción práctica: entrenar con el músculo en una posición más alargada no significa que toda la fuerza sea pasiva. Si existe activación, las fibras producen fuerza; si además las estructuras pasivas ofrecen resistencia, esa contribución forma parte del contexto mecánico. Tampoco basta con saber que una articulación llega a un extremo para calcular la longitud de todos los músculos implicados, especialmente si atraviesan más de una articulación.
Un análisis docente puede comparar la posición de dos articulaciones y preguntar qué cambia para un músculo biarticular, sin asignar resultados de hipertrofia no medidos. Primero se identifica la anatomía funcional; después se examina el movimiento y la resistencia. La explicación se mantiene en el terreno del modelo. Para afirmar que una longitud de entrenamiento produce mayor crecimiento en una región concreta haría falta evidencia de ese músculo, ese protocolo y esa población, no únicamente una curva general de fuerza y longitud.
Isométrico, concéntrico y excéntrico: cambia la situación mecánica
La denominación de una acción muscular informa sobre su relación con el cambio de longitud mientras produce fuerza. Esa información es importante, pero no describe toda la sesión. El recorrido, la velocidad, la carga y la experiencia previa siguen importando. Por ello, ninguna etiqueta de acción basta para ordenar los ejercicios de mayor a menor potencial de hipertrofia.
En una acción concéntrica, el músculo considerado se acorta mientras actúa; en una excéntrica, se alarga bajo activación. La denominación isométrica se utiliza cuando la longitud del sistema considerado permanece aproximadamente constante. En tareas articulares reales, mantener un ángulo no significa que cada componente interno del complejo músculo-tendón conserve exactamente su longitud. El nivel de descripción debe quedar claro.
Schoenfeld recoge que los tipos de solicitación pueden producir respuestas moleculares distintas y presenta ejemplos experimentales con sus condiciones. De esos resultados no se desprende que cualquier fase excéntrica sea superior a cualquier fase concéntrica para cualquier persona. La carga soportada, la familiaridad y la distribución del trabajo cambian la comparación. Tampoco sería válido extrapolar una preparación muscular animal o una estimulación eléctrica a una rutina humana completa sin reconocer esas diferencias (Schoenfeld, 2021, pp. 30–31).
Para enseñar el concepto, puede analizarse hipotéticamente una elevación y un descenso controlados de un objeto. El mismo objeto participa en ambas fases, pero la situación del músculo no es idéntica. La observación ofrece vocabulario para describir el movimiento; no registra tensión celular ni crecimiento. Si el objetivo posterior es diseñar entrenamiento, la información se combina con tolerancia, técnica, recuperación y antecedentes. La fase excéntrica merece atención por su mecánica, no porque el dolor que pudiera producir certifique una adaptación mayor.
Duración de la repetición, velocidad y esfuerzo
La duración de una serie indica cuánto tiempo transcurre, pero no registra la fuerza que transmite cada fibra durante ese intervalo. La velocidad y el esfuerzo aportan información diferente. Un análisis completo evita convertir cualquiera de estas variables en una cifra autosuficiente que explique el estímulo mecánico y anticipe la hipertrofia.
Una repetición deliberadamente lenta puede alargar el tiempo, pero ese tiempo también puede incluir segmentos con demandas mecánicas distintas. Además, cambiar la ejecución puede modificar la resistencia tolerada y el número de repeticiones. Comparar únicamente segundos deja sin resolver qué tejido trabajó, con qué fuerza y durante qué parte del movimiento. El tiempo bajo tensión es una descripción operativa de la tarea, no un registro continuo de tensión intracelular.
La velocidad observada tampoco permite deducir directamente la intención. Una persona puede intentar mover con rapidez y ejecutar lentamente porque la carga lo exige. Otra puede frenar voluntariamente el movimiento con una carga moderada. La trayectoria visible podría parecer semejante y, sin embargo, la consigna y la coordinación serían diferentes. Zatsiorsky y colaboradores distinguen métodos y demandas de fuerza precisamente porque el movimiento no se interpreta solo por su apariencia (Zatsiorsky et al., 2021, cap. 4).
El esfuerzo percibido ayuda a comunicar cómo se vive la tarea, pero no sustituye la mecánica ni mide una ruta molecular. En un registro docente hipotético conviene separar tres columnas: ejecución observada, resistencia y recorrido utilizados, y percepción comunicada por la persona. Registrar esas diferencias permite analizar cambios sin afirmar que una sensación concreta revela activación de costámeros. La utilidad del registro está en hacer comparable la tarea, no en inventar un sensor fisiológico a partir de la experiencia subjetiva.
Reclutar fibras no equivale a medir su exposición mecánica
Para producir fuerza voluntaria el sistema nervioso recluta unidades motoras y regula sus descargas. Esa activación permite que las fibras contribuyan, pero no mide toda su historia mecánica. Entender la relación entre control neural y solicitación ayuda a evitar una confusión habitual: identificar participación eléctrica con una dosis idéntica de estímulo de crecimiento.
Una unidad motora comprende una motoneurona y las fibras que inerva. Aumentar las unidades activas y modificar su frecuencia de descarga son mecanismos diferentes de regulación de la fuerza. La tarea, la rapidez de producción y la fatiga afectan su participación. El principio del tamaño de Henneman aporta el marco para interpretar el reclutamiento, sin asignar a cada tipo de fibra un porcentaje universal de una repetición máxima.
Una fibra activa no recibe necesariamente la misma solicitación que otra durante toda una serie. La fuerza depende de sus condiciones mecánicas y fisiológicas, además de la entrada neural. Por eso, demostrar reclutamiento no demuestra igualdad de tensión, duración o adaptación. Schoenfeld reconoce esta limitación al discutir las interpretaciones de activación durante ejercicios con diferentes cargas (Schoenfeld, 2021, pp. 6–7, 42, 93).
La electromiografía superficial registra una señal compuesta y puede aportar información sobre la actividad eléctrica bajo condiciones de adquisición definidas. No cuenta automáticamente todas las unidades activas ni convierte una amplitud mayor en una predicción de mayor hipertrofia. En una explicación de clase, conviene colocar activación y exposición mecánica en casillas relacionadas, pero distintas. Así se conserva el vínculo entre neurofisiología y entrenamiento sin utilizar un registro eléctrico para responder preguntas que requieren medidas mecánicas o seguimiento del crecimiento.
Fomin y Collins describen el EMG superficial como registro de actividad eléctrica y señalan la influencia de la disposición de electrodos y señales vecinas (Fomin y Collins, 2022, pp. 198–200). Esa precisión añade un límite instrumental a la interpretación de la tensión: comparar amplitudes eléctricas no equivale a medir fuerza en costámeros, deformación de membrana o exposición mecánica de cada fibra.
French vincula transferencia con el efecto de una tarea entrenada sobre otra tarea o situación (French, 2022, extracto del capítulo 17). Para interpretar hipertrofia, esa distinción obliga a separar crecimiento local y rendimiento de una acción. Un aumento muscular hipotético no indica por sí mismo que haya cambiado la coordinación necesaria para interceptar un balón o dirigir un lanzamiento.
La sobrecarga necesita una organización que permita repetir el trabajo
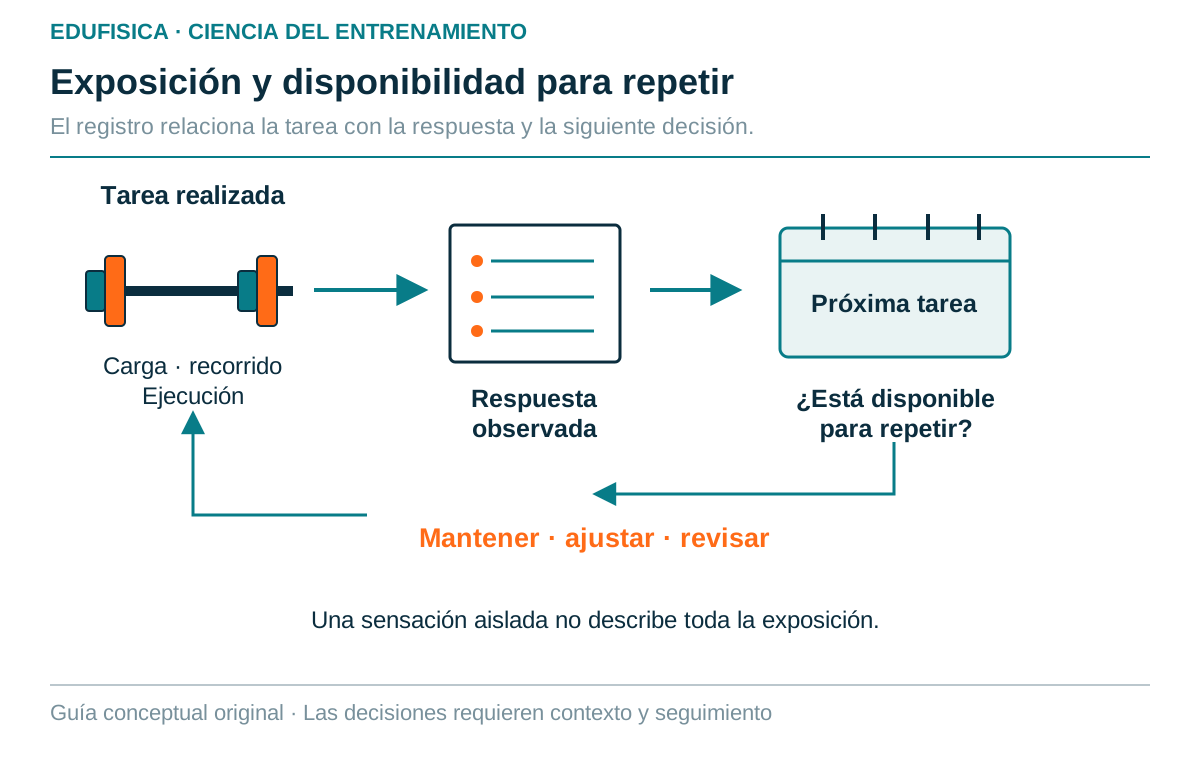
La adaptación depende de exposiciones que se organizan a lo largo del tiempo. Una sesión aislada puede mostrar un esfuerzo considerable, pero no describe la continuidad del entrenamiento. La progresión cobra sentido cuando aumenta o reorganiza la exigencia de manera que la persona pueda seguir practicando, recuperándose y sosteniendo el propósito del programa.
Progresar no exige que cada sesión añada peso. También puede significar ejecutar mejor un recorrido, tolerar una cantidad de trabajo previamente difícil o mantener un rendimiento comparable con mayor control. Estas posibilidades no son equivalentes: cada una describe un cambio distinto y necesita criterios acordes al objetivo. La decisión no se toma a partir de una sola sensación ni de una idea molecular aislada.
El tejido responde en un organismo que duerme, se alimenta, estudia, trabaja y practica otras actividades. Esas condiciones forman parte del contexto de adaptación. Interpretar una semana difícil como un fallo de los sensores musculares simplifica en exceso el problema. Los manuales de fuerza sitúan la recuperación, la progresión y la coordinación de cargas dentro de la planificación, no como un añadido que se considera solo después de que aparezca un problema (Zatsiorsky et al., 2021, cap. 6; Bompa & Buzzichelli, 2022, cap. 3).
Un criterio docente útil consiste en observar la repetibilidad de la tarea. Si la modificación de la carga impide mantener el propósito, altera de forma no prevista la ejecución o desplaza sistemáticamente otras actividades relevantes, merece revisión. Esto no establece una regla numérica universal: invita a analizar la relación entre estímulo y disponibilidad. La mecanotransducción explica parte del proceso biológico; la planificación debe crear condiciones para que ese proceso pueda integrarse en una trayectoria de entrenamiento.
Un ejemplo docente para separar palanca, esfuerzo y sensación
Una situación hipotética de aula puede mostrar por qué tres descripciones de un ejercicio no son intercambiables. El objetivo no sería estimar fuerzas internas ni provocar hipertrofia durante la demostración, sino aprender a observar. Cambiar una distancia permite analizar una variable mecánica visible mientras se reconoce qué permanece fuera del alcance de la observación.
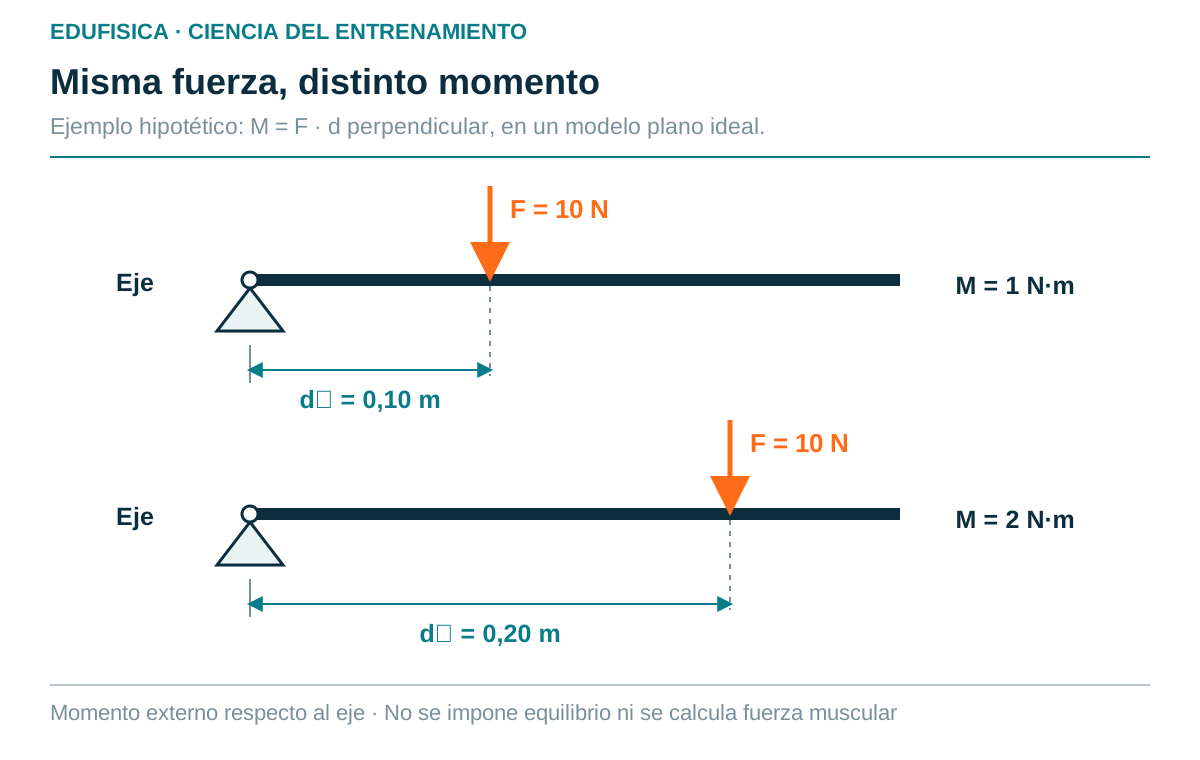
Ejemplo hipotético. El docente utiliza un modelo de palanca sobre una mesa, con un apoyo claramente marcado y un objeto ligero que puede situarse a dos distancias del eje. Antes de moverlo, el grupo identifica la fuerza del objeto y su línea de acción. Después compara el momento externo previsto en ambas posiciones. La actividad utiliza el mismo objeto, de modo que no atribuye el cambio a una modificación de masa.
Para realizar un cálculo, el docente puede proponer una fuerza ficticia de 10 newtons situada a 0,10 y 0,20 metros perpendiculares del eje. Los momentos serían uno y dos newton metro, respectivamente. Son datos elegidos para ilustrar la proporcionalidad del modelo plano. No corresponden a una medición de estudiantes ni a un cálculo de fuerzas articulares. La distinción se escribe junto al ejemplo y evita convertir una demostración en un resultado experimental.
La segunda parte consiste en preguntar qué faltaría para trasladar el razonamiento a un movimiento humano: geometría, contribución de músculos, comportamiento de tejidos y condiciones dinámicas, entre otros elementos. Por último, se compara la descripción mecánica con una posible sensación de dificultad. Si una posición parece más exigente, eso puede orientar nuevas preguntas, pero no revela el valor de tensión en cada fibra ni cuánto crecerá el músculo. La demostración enseña relaciones y límites del modelo al mismo tiempo.
Cómo comparar ejercicios sin atribuirles efectos celulares imaginarios
Una comparación útil necesita un propósito y variables que puedan describirse con claridad. Antes de decidir qué ejercicio ofrece más tensión, conviene preguntar respecto a qué músculo, en qué parte del recorrido y para qué persona. Las respuestas no se obtienen únicamente observando una carga mayor, una postura llamativa o una sensación más intensa.
Primero se define la acción que se quiere estudiar y la resistencia que se opone a ella. Después se describe el recorrido y la posición de las articulaciones. Esta descripción permite formular hipótesis mecánicas: dónde aumenta el brazo externo, qué músculos podrían contribuir y qué cambio introduce una modificación de apoyo. Las hipótesis siguen siendo hipótesis si no existe una medición o un modelo validado que permita cuantificarlas.
En segundo lugar se considera la ejecución real. Un ejercicio que sobre el papel parece adecuado puede resultar difícil de reproducir para una persona en un momento determinado. La experiencia, la movilidad disponible y la comprensión de la consigna modifican la tarea que finalmente se realiza. La selección de ejercicios en los manuales contempla estas condiciones junto con la función del músculo y el objetivo de entrenamiento (Zatsiorsky et al., 2021, cap. 6).
Por último se separa la justificación mecánica del resultado observado a medio plazo. Una explicación razonable sobre la distribución de momentos no demuestra automáticamente superioridad de hipertrofia. Esa afirmación requiere comparar intervenciones y medidas de crecimiento pertinentes. En el registro práctico puede escribirse «se eligió para trabajar este recorrido con una ejecución reproducible», que es una justificación verificable, en lugar de «activa los sensores de crecimiento mejor», que atribuye un mecanismo no medido.
Qué observar cuando el objetivo es crecimiento muscular
La hipertrofia describe un cambio estructural mantenido y su evaluación debe corresponder a ese objetivo. Una medida tomada al terminar una sesión puede reflejar otras respuestas. Diferenciar tamaño muscular, rendimiento y sensaciones evita que un registro útil se convierta en una conclusión excesiva sobre lo que ha ocurrido dentro del tejido.
El rendimiento en una tarea de fuerza puede cambiar por coordinación, familiaridad y modificaciones musculares, entre otras influencias. Por ello, mejorar una repetición no demuestra por sí solo crecimiento. De manera inversa, una evaluación de tamaño no explica por completo un cambio de rendimiento. Cada medida responde a una pregunta y requiere condiciones de repetición que permitan comparar momentos distintos.
La ecografía, las imágenes por resonancia y las biopsias no estudian exactamente el mismo objeto ni la misma región. Tampoco una estimación general de masa libre de grasa equivale a una medida específica de las fibras de un músculo. Schoenfeld presenta métodos de evaluación y sus limitaciones para que el diseño del estudio determine qué conclusión es razonable, en lugar de interpretar cualquier incremento corporal como hipertrofia (Schoenfeld, 2021, cap. 3).
En un seguimiento docente o deportivo que no disponga de estas técnicas, se pueden documentar carga, recorrido, ejecución y rendimiento, siempre identificándolos como tales. Es preferible una observación modesta y precisa a una cifra presentada como crecimiento sin respaldo. Si se realizan mediciones corporales, su interpretación debe considerar condiciones de adquisición y cambios que no sean necesariamente tejido contráctil. La honestidad del registro reside en decir qué se midió, cuándo y con qué limitaciones.
Qué aporta la investigación reciente a la explicación del estímulo
Actualizar la explicación no significa sustituir cada concepto por una novedad, sino revisar qué afirmaciones resisten el contraste con resultados posteriores. La tensión mecánica conserva un papel central, mientras que algunas interpretaciones de sensaciones y señales agudas necesitan más cautela. Esa revisión permite mantener los fundamentos y modificar las simplificaciones que se vuelven poco defendibles.
Van Every y colaboradores, en una revisión publicada inicialmente en 2025, cuestionan que la congestión, las elevaciones hormonales agudas o el estrés metabólico demuestren por sí mismos una contribución independiente al crecimiento. Es una evaluación crítica de la evidencia, no un experimento que mida todo mecanismo posible. Su utilidad consiste en recordar que observar una respuesta durante una sesión no establece su papel causal en la hipertrofia mantenida (Van Every et al., 2025).
Esta lectura complementa el manual de Schoenfeld: las hipótesis metabólicas pueden estudiarse, pero no deben convertirse en instrucciones para perseguir sensaciones. Asimismo, reconocer candidatos mecanosensibles no autoriza una clasificación comercial de ejercicios según supuesta activación de costámeros. El vínculo entre una tarea y una adaptación se construye con evidencia mecánica, fisiológica y longitudinal, no con una sola fotografía de una ruta molecular.
Una forma práctica de incorporar una publicación nueva consiste en identificar qué cambia respecto al marco anterior. ¿Aporta un mecanismo en células, una intervención en animales, una comparación humana o una revisión crítica? ¿Estudia una sesión o entrenamiento mantenido? Estas preguntas no sustituyen el contenido del estudio, pero impiden que una novedad localizada se presente como una reescritura completa de la fisiología. El resultado es una explicación que puede actualizarse sin perder coherencia.
Errores que cambian el significado de la tensión mecánica
Los errores más frecuentes aparecen al utilizar una medida para representar otra que no se ha obtenido. Masa externa, momento articular, actividad eléctrica, dolor y crecimiento no son expresiones distintas de una misma variable. Mantener sus diferencias permite formular explicaciones más útiles y evita que un concepto fisiológico termine convertido en una consigna sin contenido.
Decir «más kilogramos significa más tensión en cualquier músculo» omite la tarea y su reparto. Decir «más segundos significa más estímulo» omite la fuerza y el recorrido durante ese tiempo. Decir «más congestión significa más crecimiento» mezcla una respuesta inmediata con una adaptación estructural. En cada caso se conserva una parte visible de la sesión y se da por resuelto lo que todavía necesita análisis.
Otra confusión consiste en describir las fibras como si alternaran turnos completamente separados. El reclutamiento añade contribuciones y regula descargas; no establece una sustitución obligatoria de todas las unidades previamente activas. Tampoco cada unidad reclutada aporta una fuerza fija que pueda sumarse sin considerar frecuencia, longitud y fatiga. Por eso, un dibujo sobre activación debería evitar colores que sugieran un cambio absoluto entre fibras que trabajan y fibras que dejan de existir en la tarea (Schoenfeld, 2021, pp. 6–7).
Finalmente, una propuesta molecular no prescribe por sí sola una intervención. Identificar una proteína sensible a carga no indica cuántas series necesita una persona, qué ejercicio tolera ni cómo se organiza su semana. La prescripción combina objetivos, respuesta observada, antecedentes y contexto. El conocimiento de mecanotransducción sirve para comprender esa respuesta y mejorar las preguntas; no permite saltarse los niveles de análisis que separan la célula de un programa completo.
Preguntas frecuentes sobre tensión y mecanotransducción
Las dudas prácticas suelen reunir conceptos de distintos niveles y pueden resolverse si primero se identifica qué se está preguntando. Las respuestas siguientes distinguen descripción mecánica, mecanismo celular y adaptación. No ofrecen una rutina universal: precisan el significado de los términos para que la discusión posterior sobre ejercicios y planificación tenga una base compartida.
- ¿Tensión mecánica significa entrenar siempre con la carga máxima?
- No. La carga externa no describe por sí sola la exposición de cada fibra. La tarea, la activación, el recorrido, la velocidad y la fatiga condicionan la solicitación. Elegir una carga requiere relacionar esas condiciones con el objetivo y la persona; el concepto no equivale a una orden de usar siempre el máximo.
- ¿Puedo sentir que se activan los costámeros?
- Una sensación durante el ejercicio no es una medida específica de actividad de los costámeros. Estas estructuras participan en conexiones mecánicas y celulares que se investigan con métodos propios. La percepción puede describir esfuerzo o malestar, pero no identifica qué proteína señalizadora cambió ni cuánto crecerá el músculo.
- ¿Una mayor señal de mTORC1 demuestra más hipertrofia?
- Una señal aguda y una adaptación mantenida requieren medidas y escalas temporales diferentes. mTORC1 participa en la regulación de procesos de síntesis, pero una muestra concreta no representa toda la respuesta del tejido ni predice por sí sola el resultado de un programa.
- ¿El tiempo bajo tensión permite comparar cualquier ejercicio?
- Permite describir una duración si se define cómo se obtiene. No identifica la fuerza transmitida durante todo el intervalo, el tejido implicado ni la distribución de la demanda. Dos series con igual duración pueden diferir en recorrido, resistencia, pausas y ejecución; esas diferencias deben conservarse en el análisis.
La pregunta siguiente en una planificación debería relacionarse con algo observable: qué tarea se pretende sostener, qué modifica una progresión y cómo se evaluará su resultado. Esa secuencia conecta la explicación celular con el trabajo cotidiano sin fingir acceso a medidas que no se tienen. Para profundizar en respuestas que acompañan a la sesión pueden consultarse estrés metabólico y restricción del flujo y daño muscular y reparación.
Referencias
- Schoenfeld, B. J. (2021). Science and development of muscle hypertrophy (2nd ed.). Human Kinetics. Editorial.
- Zatsiorsky, V. M., Kraemer, W. J., & Fry, A. C. (2021). Science and practice of strength training (3rd ed.). Human Kinetics. Editorial.
- Bompa, T. O., & Buzzichelli, C. A. (2022). Periodization of strength training for sports (4th ed.). Human Kinetics. Editorial.
- Boppart, M. D., & Mahmassani, Z. S. (2019). Integrin signaling: Linking mechanical stimulation to skeletal muscle hypertrophy. American Journal of Physiology-Cell Physiology, 317(4), C629–C641. https://doi.org/10.1152/ajpcell.00009.2019.
- Roberts, M. D., McCarthy, J. J., Hornberger, T. A., Phillips, S. M., Mackey, A. L., Nader, G. A., Boppart, M. D., Kavazis, A. N., Reidy, P. T., Ogasawara, R., Libardi, C. A., Ugrinowitsch, C., Booth, F. W., & Esser, K. A. (2023). Mechanisms of mechanical overload-induced skeletal muscle hypertrophy: Current understanding and future directions. Physiological Reviews, 103(4), 2679–2757. https://doi.org/10.1152/physrev.00039.2022.
- Van Every, D. W., Lees, M. J., Wilson, B., Nippard, J., & Phillips, S. M. (2025). Load-induced human skeletal muscle hypertrophy: Mechanisms, myths, and misconceptions. Journal of Sport and Health Science. Advance online publication. https://doi.org/10.1016/j.jshs.2025.101104.
- French, D. N., & Torres Ronda, L. (Eds.). (2022). NSCA’s essentials of sport science. Human Kinetics. Editorial.
- Fomin, R. N., & Collins, C. C. (2022). Electroencephalography and electroneuromyography. In D. N. French & L. Torres Ronda (Eds.), NSCA’s essentials of sport science (pp. 191–211). Human Kinetics. Editorial.
- Joyce, D., & Lewindon, D. (Eds.). (2022). High-performance training for sports (2nd ed.). Human Kinetics. Editorial.
- French, D. N. (2022). Translating athletic qualities into sport performance. In D. Joyce & D. Lewindon (Eds.), High-performance training for sports (2nd ed.). Human Kinetics. Extracto editorial consultado.