
El reclutamiento de unidades motoras es el proceso por el cual el sistema nervioso incorpora unidades antes inactivas para producir fuerza. El principio de tamaño de Henneman explica por qué, ante entradas excitadoras comparables, las unidades de menor umbral suelen participar antes que las de mayor umbral. Esa organización permite ajustar el esfuerzo sin tratar el músculo como un bloque que simplemente se enciende.
Levantar una mochila, sostener una postura y realizar un lanzamiento requieren fuerza, pero plantean problemas distintos. Cambian la rapidez, la dirección, la duración y la coordinación entre músculos. Comprender el reclutamiento ayuda a interpretar esas diferencias. Para relacionar la activación neural con las fuerzas y los momentos articulares, puede consultarse el área de biomecánica; su aplicación escolar se desarrolla en fuerza en la edad escolar.
La unidad motora: una neurona y las fibras que inerva
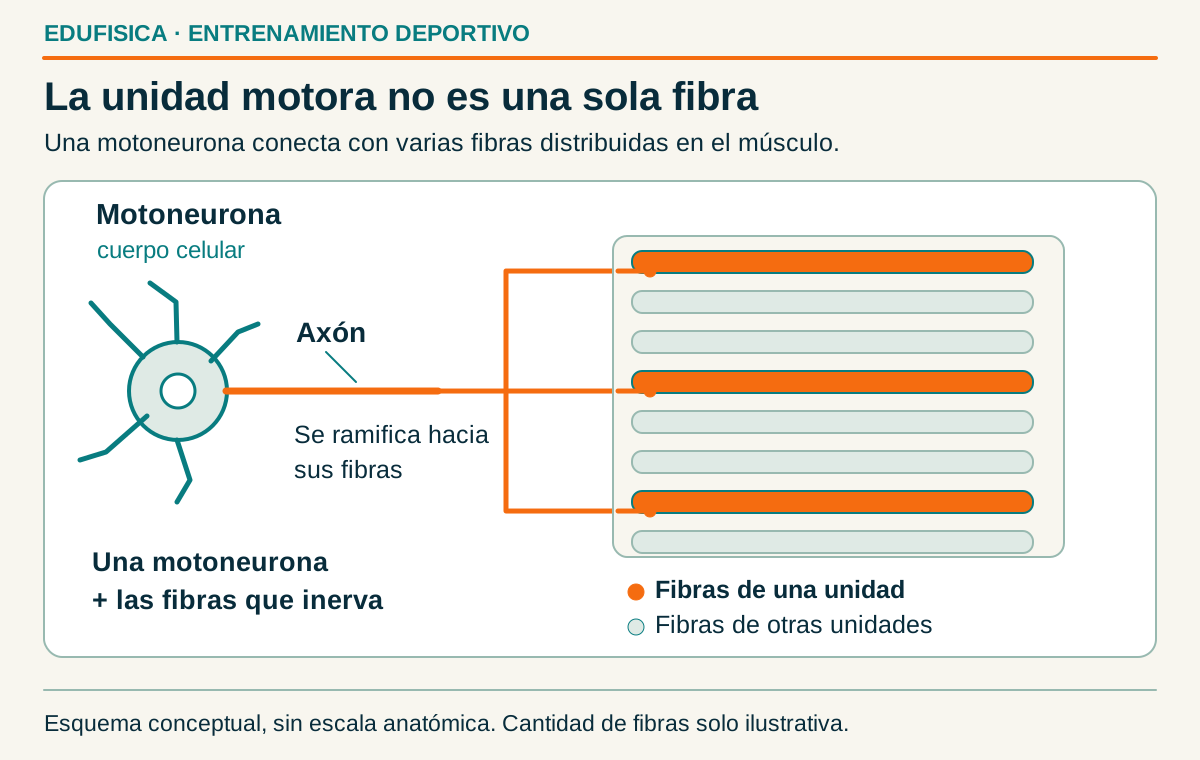
Una unidad motora reúne una motoneurona alfa, su axón y todas las fibras musculares extrafusales que inerva. Cuando esa neurona descarga, sus impulsos alcanzan las terminaciones del axón y activan las fibras correspondientes. Un músculo contiene numerosas unidades motoras; una unidad tampoco es una fibra aislada ni todo el músculo.
El término extrafusal distingue las fibras que producen la mayor parte de la fuerza muscular de las fibras especializadas situadas dentro de los husos musculares. Para estudiar el reclutamiento voluntario interesa la relación entre la motoneurona alfa y su conjunto de fibras. Esa relación es la que Zatsiorsky, Kraemer y Fry describen como un elemento básico de la salida del sistema motor (2021, pp. 54–55).
Las ramificaciones del axón explican por qué una única neurona puede influir sobre muchas fibras. Sin embargo, el número de fibras no es idéntico en todas las unidades ni en todos los músculos. Los músculos que permiten ajustes finos y los que producen grandes esfuerzos presentan organizaciones diferentes. Utilizar un número fijo de fibras por unidad borra esa diversidad y confunde un ejemplo anatómico con una característica universal.
Conviene distinguir el impulso eléctrico de su respuesta mecánica. Un potencial de acción no se vuelve progresivamente más grande para producir más fuerza. Lo que puede cambiar es la frecuencia con que aparece, el número de unidades activas y las condiciones en que sus fibras generan tensión. Por eso, la expresión todo o nada no significa que una unidad reclutada produzca siempre la misma fuerza.
En un ejemplo hipotético, dos unidades pueden estar activas durante una tarea y contribuir de manera diferente: una descarga con mayor frecuencia, otra posee fibras con propiedades contráctiles distintas. Aunque el número de unidades activas no cambie, la fuerza resultante puede variar. La respuesta depende también de longitud, velocidad y estado de fatiga, no únicamente de la presencia de impulsos nerviosos.
Qué aportó Henneman al estudio del control de la fuerza
El aporte asociado a Elwood Henneman relaciona el tamaño y las propiedades de las motoneuronas con su tendencia a incorporarse en un orden determinado. Los manuales de entrenamiento recogen esa organización para explicar la gradación de fuerza. Su interés está en conectar la excitabilidad neural con las demandas mecánicas de una acción.
Schoenfeld atribuye la formulación del principio a Henneman y remite al trabajo de Henneman, Somjen y Carpenter de 1965; Zatsiorsky y colaboradores lo presentan mediante el reclutamiento de motoneuronas alfa de menor a mayor tamaño (Schoenfeld, 2021, pp. 6, 233; Zatsiorsky et al., 2021, pp. 55, 58). La denominación reconoce una contribución histórica a la neurofisiología, no una rutina concreta de entrenamiento.
Tamaño, excitabilidad y umbral: por qué importa la entrada comparable
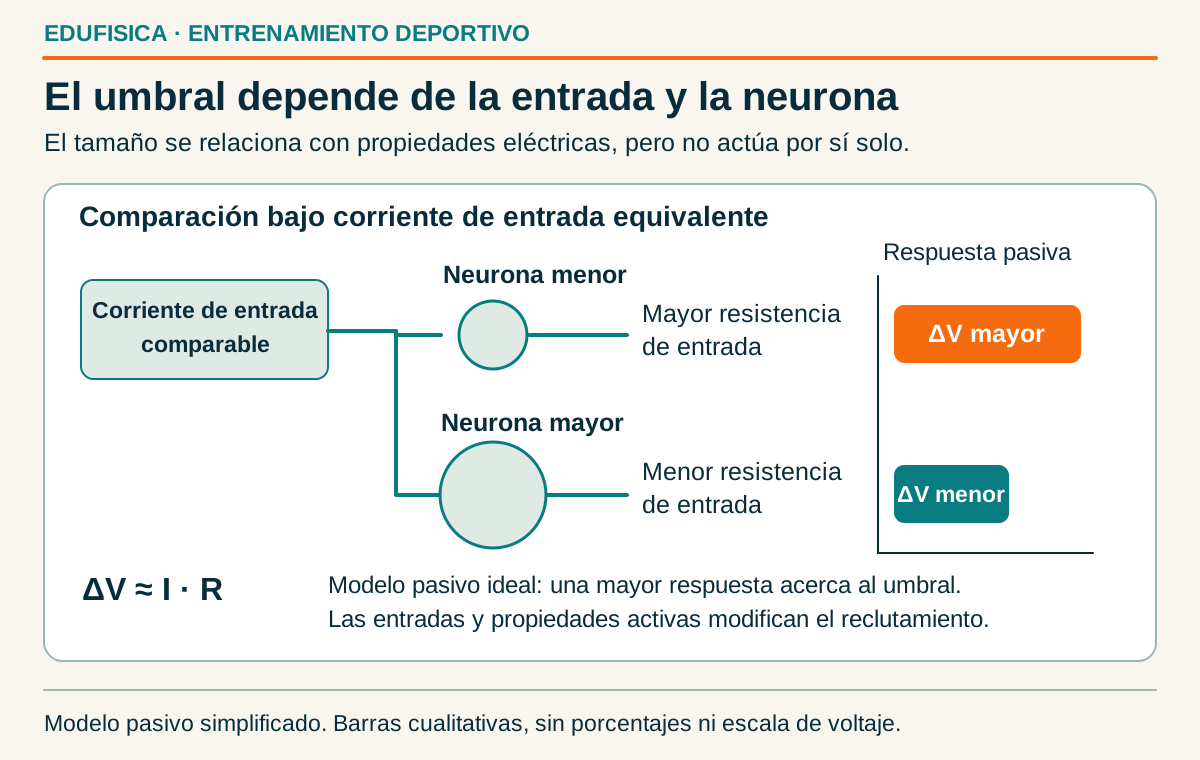
El principio de tamaño describe una relación entre propiedades de la motoneurona y umbral de activación. Ante corrientes excitadoras comparables, las neuronas pequeñas suelen alcanzar antes el umbral. La comparación exige considerar la entrada que reciben: observar dos unidades con actividades distintas no demuestra, por sí mismo, que una regla fisiológica haya desaparecido.
Hug y colaboradores explican que las motoneuronas pequeñas presentan mayor resistencia de entrada y, ante corrientes sinápticas equivalentes, una variación de potencial mayor. También advierten que las entradas pueden distribuirse de forma desigual y que las propiedades intrínsecas pueden modularse. Su propuesta integra el principio de tamaño con grupos funcionales que comparten entradas, sin asumir que todo el músculo recibe siempre una señal idéntica (Hug et al., 2023).
La ley de Ohm ofrece una representación didáctica del componente pasivo de esa explicación:
Aquí, ΔV es la variación de potencial, I la corriente y R la resistencia de entrada. Es una aproximación, no un modelo completo de una neurona. La membrana también posee capacitancia, canales activos y propiedades dependientes del estado. La ecuación ayuda a comprender una relación; no permite calcular el reclutamiento de un deportista a partir del peso que levanta.
Consideremos un ejemplo hipotético sin valores medidos. Dos elementos pasivos reciben una corriente equivalente y uno ofrece mayor resistencia: su variación de potencial es mayor. Al llevar la comparación a motoneuronas reales deben añadirse sus propiedades activas y las diferencias entre las entradas. El ejemplo muestra por qué el contexto de comparación forma parte de la explicación y no constituye una salvedad secundaria.
El umbral tampoco es una etiqueta idéntica a porcentaje de una repetición máxima. El umbral de reclutamiento puede expresarse respecto a la fuerza de una prueba específica; el porcentaje de 1RM describe una carga externa en un ejercicio. Cambiar de una contracción isométrica a una sentadilla modifica la tarea. Zatsiorsky y colaboradores señalan además que el orden puede variar cuando un músculo multifuncional interviene en movimientos diferentes (2021, p. 55).
Reclutamiento y frecuencia de descarga son mecanismos diferentes
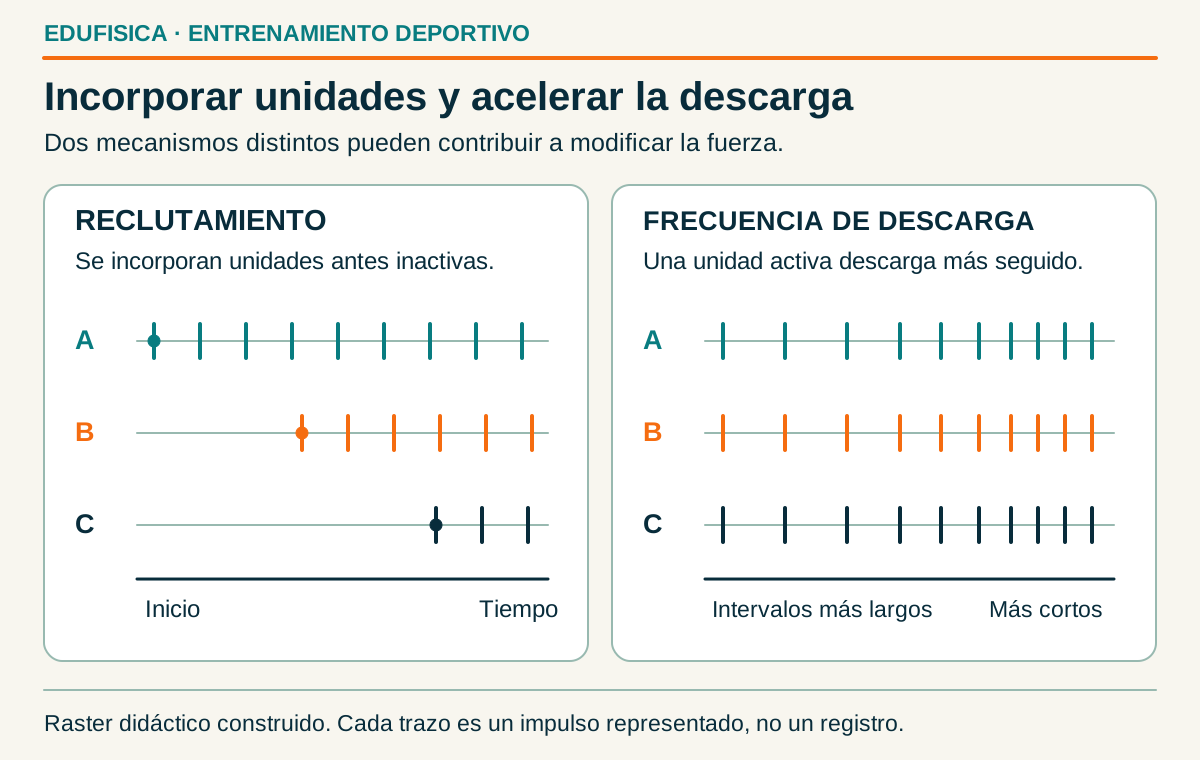
Reclutar significa incorporar unidades motoras a la actividad; aumentar la frecuencia de descarga significa enviar más impulsos por unidad de tiempo desde unidades ya activas. Ambos mecanismos contribuyen a graduar fuerza, pero no son intercambiables. Un aumento de fuerza puede combinar incorporación de unidades con cambios en el ritmo de las que ya participan.
Zatsiorsky y colaboradores separan expresamente reclutamiento, frecuencia y sincronización. También describen que el peso relativo de reclutamiento y frecuencia varía entre músculos y rangos de fuerza (2021, pp. 54–56). Una representación con dos controles ayuda: un control modifica cuántas unidades participan y el otro modifica la repetición de sus descargas. La comparación es didáctica; el sistema real combina ambos procesos durante una acción.
La respuesta mecánica de una fibra tarda más que el impulso eléctrico que la inicia. Cuando aparecen impulsos cercanos, sus respuestas pueden superponerse y producir sumación temporal de tensión. Por tanto, una unidad que continúa activa puede contribuir con una tensión distinta si cambia su frecuencia de descarga. No hace falta que cada incremento de fuerza proceda de una unidad recién incorporada.
Enoka y Duchateau analizan estas contribuciones en tareas lentas, rápidas y fatigosas. Su revisión muestra que no existe una proporción única entre reclutamiento y frecuencia válida para cualquier músculo. La tarea y el intervalo de fuerza modifican la interpretación; los resultados de un músculo no definen automáticamente una regla para todo el cuerpo (Enoka & Duchateau, 2017).
La sincronización describe coincidencias temporales entre descargas de unidades diferentes. No equivale a que todas comiencen a trabajar juntas ni a que cada fibra produzca más tensión. Schoenfeld recoge resultados contradictorios sobre su contribución a las adaptaciones de fuerza y señala que su efecto, cuando existe, puede ser modesto (2021, p. 7). Es más preciso diferenciar los mecanismos que reunirlos bajo una idea imprecisa de «activar mejor».
Otra distinción separa coordinación intramuscular e intermuscular. La primera se refiere a la organización de actividad dentro de un músculo; la segunda, a la relación entre músculos que colaboran o se oponen durante una acción. Una persona puede mejorar un levantamiento al coordinar la cadera, la rodilla y el tronco, aunque no se haya demostrado un cambio de reclutamiento en un músculo concreto.
Tipos de unidades motoras y perfiles de fibras musculares
Las unidades motoras pueden diferenciarse por sus propiedades contráctiles y resistencia a la fatiga. Los manuales distinguen unidades lentas y rápidas, y describen fibras tipo I, IIa y IIx. Son clasificaciones relacionadas, pero el tipo histológico de fibra, el umbral neural y el tamaño de una unidad no son medidas idénticas.
Las fibras de una unidad comparten características asociadas a su inervación, mientras que un músculo reúne unidades con perfiles diversos. Zatsiorsky y colaboradores presentan las fibras I como lentas, las IIa como rápidas con resistencia intermedia y las IIx como rápidas con menor resistencia a la fatiga (2021, pp. 54–55). Esa comparación orienta la lectura funcional; no establece cuánto dura cualquier esfuerzo realizado por una persona.
| Perfil de unidad | Propiedades generales | Relación habitual con fibras | Qué no permite deducir |
|---|---|---|---|
| Lenta | Respuesta contráctil lenta y mayor resistencia a la fatiga. | Predominio de características tipo I. | No indica una capacidad fija de resistencia del deportista. |
| Rápida resistente a la fatiga | Respuesta rápida y capacidad relativamente mayor de sostener actividad que otras unidades rápidas. | Características relacionadas con fibras IIa. | No convierte todos los esfuerzos de intensidad media en tareas exclusivas de IIa. |
| Rápida fatigable | Respuesta rápida y menor resistencia relativa a la fatiga. | Características relacionadas con fibras IIx. | No implica que se active únicamente con cargas máximas. |
La clasificación de tres perfiles responde a propiedades funcionales; la identificación histológica de fibras utiliza otros criterios. Tampoco debe confundirse una fibra IIx humana con la denominación IIb empleada en otros contextos. Bompa y Buzzichelli distinguen IIa y IIx al tratar las fibras rápidas del músculo humano (2022, p. 23). La precisión terminológica evita convertir categorías de especies o técnicas distintas en equivalencias automáticas.
La resistencia a la fatiga es relativa, no una prohibición de cansarse. Una unidad resistente puede perder capacidad si el esfuerzo y las condiciones lo exigen. Del mismo modo, una unidad rápida participa dentro de una coordinación completa, no como un interruptor reservado a un deporte. Es preferible hablar de propiedades que favorecen determinadas demandas que repartir deportes enteros entre fibras «de resistencia» y fibras «de potencia».
Acciones rápidas: importa cuándo aparece la fuerza
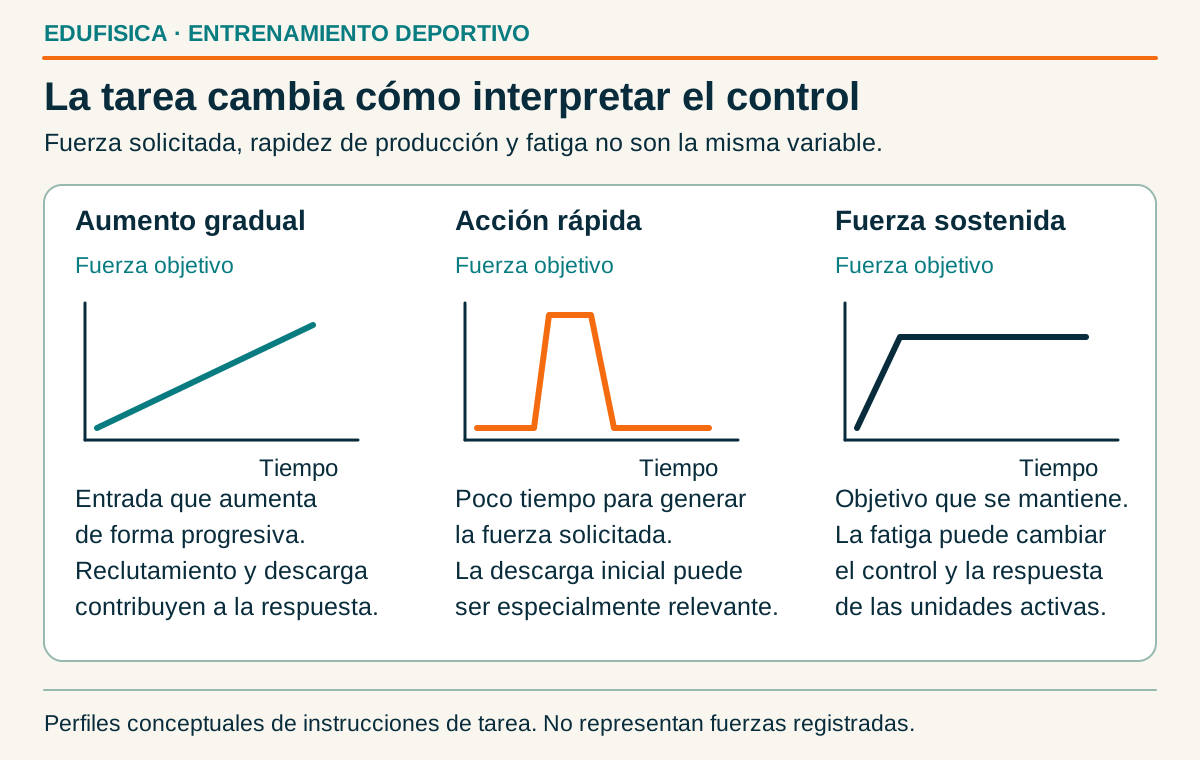
Una acción rápida exige producir fuerza dentro de un tiempo limitado. El problema no consiste únicamente en alcanzar un valor máximo, sino en desarrollar fuerza a tiempo para la tarea. Reclutamiento y frecuencia de descarga contribuyen a esa respuesta, junto con las propiedades musculares y la coordinación del movimiento.
Enoka y Duchateau describen que las contracciones rápidas pueden comprimir los intervalos de incorporación de unidades y comenzar con frecuencias altas. Una sucesión temporal muy breve no demuestra que todas las unidades se recluten sin orden. Cambia la escala de tiempo con que hay que observar la activación (Enoka & Duchateau, 2017).
La tasa media de desarrollo de fuerza, o RFD, expresa cuánto cambia la fuerza en un intervalo:
Si la fuerza se expresa en newtons y el tiempo en segundos, la unidad es N/s. El intervalo elegido debe indicarse: dos cálculos sobre ventanas diferentes pueden responder a preguntas distintas. Bompa y Buzzichelli utilizan la curva fuerza-tiempo para distinguir el comienzo de una acción y su desarrollo posterior (2022, p. 30). RFD, fuerza máxima y potencia no son sinónimos.
En un lanzamiento hipotético, mejorar la fuerza máxima puede ampliar el potencial disponible, pero el resultado depende de aplicarla durante la secuencia y en una dirección útil. Una repetición pesada lenta y una acción ligera rápida no se comparan solo por sus kilogramos. La intención de acelerar, la velocidad obtenida y el tiempo de aplicación son variables diferentes que conviene registrar por separado.
Fatiga: más esfuerzo no significa siempre más fuerza
Durante una tarea fatigosa puede aumentar el esfuerzo necesario para mantener una fuerza que antes resultaba fácil. El sistema nervioso puede modificar la incorporación de unidades y sus descargas, mientras disminuye la capacidad de las fibras para producir tensión. Por eso, una actividad neural mayor puede coexistir con una fuerza estable o decreciente.
Schoenfeld describe que la fatiga durante contracciones de baja carga puede acompañarse de una reducción del umbral de unidades de mayor umbral. Sin embargo, diferencia reclutamiento de estímulo suficiente para hipertrofia y advierte que falta evidencia para identificar el fallo con reclutamiento máximo (2021, pp. 6–7, 42, 129). La relación entre esfuerzo, activación y adaptación no se resuelve con una sola variable.
El fallo de una tarea se define respecto a lo que se pide realizar. No poder completar otra repetición con una carga y una técnica determinadas no significa que todas las fibras estén inactivas. Tampoco permite afirmar que toda unidad haya sido reclutada o que la fatiga tenga una única localización. La exigencia externa y la capacidad momentánea dejan de ser compatibles, pero esa observación no identifica el mecanismo responsable.
En un ejemplo hipotético, una persona sostiene un objeto y empieza a modificar la postura. Si la consigna exige mantener una posición concreta, la tarea puede darse por terminada aunque todavía pueda sostener el objeto de otra manera. La finalización depende también del criterio técnico. Comparar únicamente el tiempo total sin registrar esas condiciones puede mezclar resistencia muscular con estrategias compensatorias.
La distinción entre fatiga central y periférica requiere mediciones adecuadas. La primera se relaciona con limitaciones en la activación voluntaria; la segunda, con cambios que reducen la respuesta del sistema neuromuscular fuera de ese componente central. El cansancio percibido no identifica por sí solo ninguna de las dos. En una clase, el reporte del estudiante aporta información relevante, pero no funciona como un diagnóstico neurofisiológico.
La restricción de flujo añade otro contexto. Wernbom y Aagaard señalan que las tareas de baja carga con restricción y fatiga pueden involucrar fibras I y II, aunque parte de la evidencia procede de medidas indirectas y existen pocos datos directos por tipo de fibra (2020). Esa revisión no convierte la restricción en una excepción universal al orden ni justifica prescribir manguitos o presiones desde una explicación del reclutamiento.
Acciones concéntricas, excéntricas y variaciones del orden
El músculo puede producir tensión mientras se acorta, mientras se alarga o sin un cambio apreciable de longitud. Estos contextos modifican la relación entre actividad neural y fuerza. No corresponde convertir la contracción excéntrica en una inversión automática del reclutamiento ni asumir que todas las tareas conservan un orden idéntico.
Schoenfeld presenta la activación preferente de unidades rápidas durante ciertas acciones excéntricas como una explicación propuesta y recoge resultados que no muestran esa preferencia (2021, p. 103). Por su parte, Duchateau y Enoka sintetizan estudios submáximos con orden de reclutamiento parecido entre alargamiento y acortamiento, pero menor frecuencia de descarga durante el alargamiento (2016). La evidencia exige describir el músculo y las condiciones evaluadas.
La fuerza externa tampoco equivale al número de unidades activas. Las propiedades mecánicas durante el alargamiento permiten relaciones diferentes entre tensión y actividad. Comparar dos fases de un ejercicio usando solo la amplitud EMG puede ocultar ese cambio. Deben considerarse longitud, velocidad, dirección, carga y forma de ejecución antes de atribuir la diferencia a una selección de fibras.
Zatsiorsky y colaboradores explican que un músculo multifuncional puede presentar distintos umbrales relativos entre movimientos (2021, p. 55). En términos docentes, cambiar la dirección de aplicación no es simplemente repetir el mismo ejercicio con otro nombre. Cambia el problema mecánico y la coordinación que lo resuelve. Eso permite estudiar especificidad sin afirmar que una postura aísla voluntariamente una unidad motora concreta.
La estimulación eléctrica externa plantea una distinción adicional. Los impulsos aplicados sobre nervios o músculo no reproducen necesariamente la distribución de entradas sinápticas de una acción voluntaria. El manual de Zatsiorsky trata esta cuestión dentro de un método de entrenamiento específico (2021, p. 121). Conviene separar mecanismos de activación; no describir cualquier dispositivo como una inversión completa y perfectamente ordenada del principio.
Qué puede orientar el principio en el entrenamiento de fuerza
El principio de tamaño ayuda a entender por qué la demanda de fuerza, la rapidez y la fatiga influyen en la participación de unidades motoras. No determina por sí solo series, repeticiones o descansos. Esas decisiones pertenecen a un programa que considera experiencia, objetivo, ejercicio, técnica y respuesta de la persona.
Zatsiorsky y colaboradores diferencian esfuerzo máximo, esfuerzo repetido con cargas no máximas y esfuerzo dinámico con intención de máxima velocidad. También distinguen el trabajo submáximo que termina antes del fallo (2021, pp. 71–72). Son maneras distintas de organizar la demanda. La misma carga externa puede formar parte de tareas diferentes si cambian el número de repeticiones, la velocidad y el criterio de finalización.
La siguiente comparación recoge cantidades concretas descritas en los libros y conserva su contexto. No representa un ensayo que haya comparado estas filas ni una prescripción común para todos los lectores. Los rangos pertenecen a propuestas de entrenamiento deportivo; tampoco equivalen a umbrales celulares.
| Contexto del manual | Cantidad descrita | Finalidad indicada | Límite de interpretación | Fuente |
|---|---|---|---|---|
| Esfuerzo máximo al entrenar un movimiento. | 1–3 repeticiones por serie. | Organizar la coordinación del movimiento con resistencias altas. | El propio libro limita el método para principiantes; no es una propuesta escolar general. | Zatsiorsky et al., 2021, pp. 71–72. |
| Ejemplos de esfuerzo máximo centrados en ejercicios diferentes. | 4–8 repeticiones en inverse curl y 2–6 en sentadilla. | Ilustrar que el ejercicio y el propósito modifican la organización. | Son ejemplos diferentes; no deben combinarse como una rutina probada. | Zatsiorsky et al., 2021, p. 72. |
| Métodos MxS-I y MxS-II dentro de una periodización deportiva. | 40%–80% y 80%–90% de 1RM, respectivamente. | Describir trabajo de coordinación entre músculos y dentro del músculo. | Los porcentajes describen métodos del manual, no fronteras universales de reclutamiento. | Bompa & Buzzichelli, 2022, p. 204. |
| Desarrollo de fuerza máxima con antecedentes de entrenamiento. | 70%–95% de 1RM y 1–5 repeticiones, con descansos completos. | Organizar esfuerzos breves en el contexto de fuerza deportiva. | El texto exige preparación previa; no basta conocer Henneman para aplicar el método. | Bompa & Buzzichelli, 2022, p. 206. |
El conocimiento del reclutamiento tampoco convierte una carga alta en superior para cualquier objetivo. Si se desea practicar una técnica, el ejercicio debe permitir la calidad de ejecución prevista. Si interesa producir fuerza rápidamente, importa el tiempo disponible. Si se busca hipertrofia, deben considerarse estímulo mecánico, volumen y continuidad del programa. Reclutar una fibra es una condición para su participación, no una prueba de crecimiento futuro.
Schoenfeld señala que las cargas ligeras con esfuerzo alto pueden implicar buena parte del conjunto de unidades disponibles, aunque reconoce resultados discordantes y limitaciones de los métodos (2021, pp. 42, 93, 129). Por tanto, la comparación útil no es «ligero activa poco» frente a «pesado activa todo». Hay que describir el momento de la serie y las condiciones del esfuerzo.
Adaptación y flexibilidad: qué aportan los estudios recientes
La investigación actual examina tanto cambios con el entrenamiento como diferencias entre tareas y poblaciones. Sus resultados amplían el estudio del reclutamiento, pero cada diseño responde a una pregunta delimitada. Una adaptación de un músculo humano, un registro animal y un modelo estadístico no constituyen demostraciones equivalentes sobre todo el sistema motor.
Del Vecchio y colaboradores siguieron unidades del tibial anterior durante cuatro semanas de entrenamiento isométrico de dorsiflexión. Encontraron cambios en umbrales normalizados y frecuencia de descarga. Completaron el estudio 25 varones de los 28 incluidos inicialmente. El trabajo permite analizar adaptación de unidades registradas en una tarea precisa; no demuestra que todos los deportes produzcan el mismo cambio (Del Vecchio et al., 2019).
Marshall y colaboradores registraron unidades de un macaco rhesus en tareas con condiciones mecánicas diferentes. Los patrones mostraron flexibilidad que no se explicaba mediante un único impulso compartido rígido. El estudio no equivale a demostrar que una persona pueda seleccionar voluntariamente cada unidad: sus registros y sesiones proceden de un solo animal (Marshall et al., 2022).
Dernoncourt y colaboradores estudiaron tareas isométricas humanas y realimentación de descargas. Su trabajo diferencia patrones estadísticos multidimensionales de control voluntario independiente: observar más dimensiones no fue suficiente para demostrar una capacidad mayor de seleccionar unidades. Las simulaciones mostraron mecanismos compatibles con esos patrones, sin identificar una causa única en vivo (Dernoncourt et al., 2025).
Electromiografía: qué se registra y qué puede inferirse
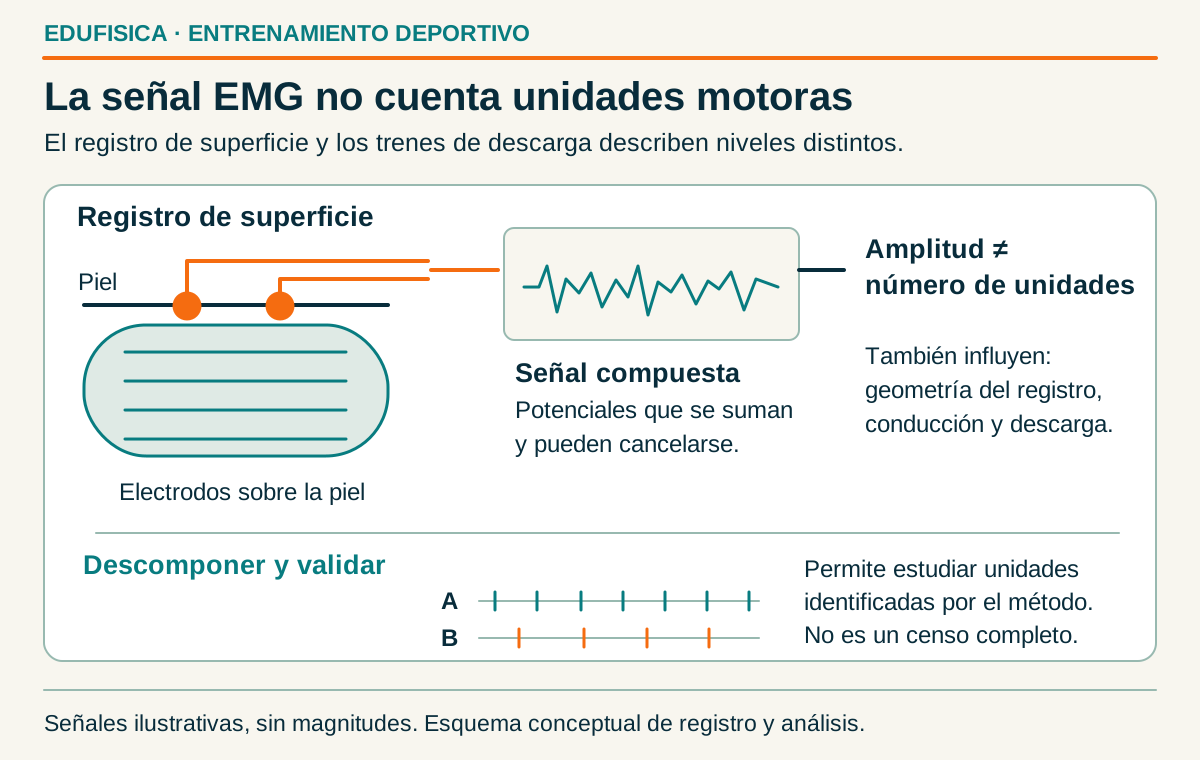
La electromiografía superficial registra actividad eléctrica mediante electrodos colocados sobre la piel. Su señal reúne contribuciones de fibras musculares y depende de cómo se adquiere. Una amplitud mayor no cuenta directamente más unidades motoras, no identifica por sí sola fibras rápidas y no demuestra que un ejercicio produzca más hipertrofia.
El capítulo de Fomin y Collins en el manual de NSCA diferencia registro intramuscular, superficial y provocado mediante estimulación. Describe además que la distancia y el área de los electrodos influyen en la amplitud, y que puede existir contaminación desde músculos vecinos (2022, pp. 198–200). Antes de interpretar un resultado hace falta saber qué se registró y bajo qué condiciones.
Farina, Merletti y Enoka explican que la señal superficial combina tiempos de descarga y características de los potenciales musculares. La geometría, el tejido conductor y la cancelación de señales influyen en amplitud y espectro. Por eso, el registro global no permite separar automáticamente cantidad de unidades, tipo de fibra y estrategia neural (2014).
La cancelación merece atención: señales de signo distinto pueden coincidir y reducir la amplitud resultante. La suma eléctrica que llega al electrodo no equivale a la suma mecánica de fuerzas. Así, dos situaciones con diferencias en la actividad de unidades pueden producir amplitudes globales difíciles de comparar. Esta es una razón para no leer un gráfico de EMG como si fuera un contador de fibras.
Fomin y Collins agrupan limitaciones relacionadas con colocación, contacto, estado de la persona, carga, ángulo y velocidad (2022, p. 205). En un ejemplo hipotético, comparar dos ejercicios con electrodos colocados de manera diferente introduce una segunda explicación para el cambio observado. Antes de atribuirlo al ejercicio hay que examinar si la adquisición fue comparable.
La descomposición busca separar trenes de descarga de unidades detectadas. La actualización de Farina y colaboradores recoge avances en registros de alta densidad, seguimiento entre sesiones y aplicaciones durante tareas dinámicas. Estos progresos amplían la información disponible, pero no convierten cualquier registro en un censo de todas las unidades del músculo; siguen siendo necesarios criterios de validación y conocimiento del alcance del método (2025).
Decir «la EMG no estudia unidades motoras» sería, por tanto, demasiado amplio. El registro intramuscular y la descomposición pueden proporcionar información de unidades identificadas. Lo que no corresponde es deducir ese nivel de detalle directamente de la amplitud superficial convencional. Tampoco debe confundirse una descarga estimada con medición directa de la fuerza producida por su unidad.
Cuatro fichas para aprender a interpretar situaciones de fuerza
Estas fichas son propuestas didácticas hipotéticas para estudiar relaciones entre tarea, fuerza y explicación neural. No reproducen protocolos de los estudios citados ni miden unidades motoras en el aula. Su objetivo es aprender a distinguir lo observado de lo inferido y formular preguntas que correspondan a las variables disponibles.
Ficha 1. Misma carga, distinta intención de movimiento
Comparar una tarea controlada con otra que incluye intención de acelerar permite reconocer que la carga externa no describe toda la demanda. La ficha utiliza observación de trayectoria, tiempo y consigna. El resultado no se interpreta como una medición de fibras activas ni como prueba de un porcentaje de reclutamiento.
Situación hipotética: un adulto con experiencia ejecuta un movimiento que conoce y para el que dispone de supervisión. La primera condición enfatiza una trayectoria controlada; la segunda permite intentar acelerar conservando la técnica acordada. Se mantiene la carga y se registran la consigna, el recorrido y el tiempo. No se añaden cargas máximas para hacer visible la diferencia.
Pregunta de interpretación: ¿qué cambió realmente? Puede cambiar la intención sin que la velocidad aumente en la misma medida. También puede variar el tiempo total por diferencias en las pausas o en el recorrido. El observador debe separar esas posibilidades antes de explicar el resultado. Una aceleración mayor no es una observación directa del tipo de unidad que participó.
Registro y progresión: empezar describiendo las condiciones con palabras y después utilizar tiempos o vídeo si el contexto lo permite. El criterio de progreso es mejorar la precisión de la comparación: misma referencia de inicio, mismo recorrido y consigna clara. La discusión final identifica qué información falta para estudiar frecuencia o reclutamiento. La ficha trabaja comprensión del mecanismo, no competición por mayor velocidad.
Ficha 2. Una tarea termina, pero la causa sigue abierta
La finalización de una tarea aporta información sobre su exigencia y la capacidad momentánea para cumplirla. No identifica por sí sola el lugar de la fatiga ni demuestra reclutamiento completo. Esta ficha enseña a definir el criterio de finalización antes de observar, para evitar explicaciones construidas después del resultado.
Situación hipotética: se revisa un vídeo de una tarea de sostén ya realizada con supervisión. Se acuerda que la postura debe mantenerse dentro de unas referencias visibles. El observador anota cuándo aparecen cambios y cuándo se incumple el criterio. Puede utilizarse material grabado en vez de solicitar a estudiantes que alcancen el agotamiento.
Pregunta de interpretación: ¿la persona dejó de cumplir por fuerza insuficiente, cambio de estrategia, incomodidad, atención o decisión de detenerse? El vídeo permite formular algunas hipótesis, pero no distinguir todos esos factores. Si existe un reporte del participante, se conserva como percepción, no como diagnóstico de fatiga central o periférica.
Registro y progresión: elaborar dos columnas, «observación» e «interpretación». En la primera se escribe una conducta visible; en la segunda, una explicación posible con la información adicional que necesitaría. Después se cambia el criterio técnico y se examina cómo afecta la duración registrada. La actividad muestra por qué la definición de la tarea modifica lo que significa llegar al fallo.
Ficha 3. Una barra de electromiografía no es un veredicto
Interpretar una comparación de EMG requiere conocer el protocolo y las condiciones de adquisición. Esta ficha utiliza un caso construido, sin valores experimentales ni imágenes que simulen resultados. Su propósito es detectar qué preguntas deberían responderse antes de convertir una diferencia eléctrica en una recomendación de ejercicio.
Situación hipotética: una presentación afirma que un ejercicio es mejor porque muestra una amplitud mayor. No informa posición de electrodos, normalización, carga relativa, recorrido o velocidad. El grupo identifica esas omisiones y organiza qué dato permitiría evaluar cada una. No se inventan respuestas para completar el protocolo.
Pregunta de interpretación: ¿qué afirmación sí podría sostenerse si el registro fuera válido? Una diferencia eléctrica en las condiciones medidas es una conclusión más delimitada que afirmar más fibras rápidas o mayor crecimiento futuro. Para estudiar esas otras cuestiones serían necesarias mediciones y diseños distintos.
Registro y progresión: empezar con una comparación incompleta y después incorporar información real del método de un estudio que el docente haya leído. Cada dato nuevo debe modificar una pregunta concreta. Al finalizar, se redacta una frase de resultado y otra de interpretación, conservando sus límites. El aprendizaje se valora por la calidad del razonamiento, no por escoger un ejercicio ganador.
Ficha 4. Mejorar un ejercicio no explica todo el rendimiento
Comparar una mejora de fuerza con una tarea deportiva permite separar capacidad, coordinación y transferencia. Esta ficha formula una situación hipotética con resultados posibles, sin atribuirlos a un programa probado. La pregunta central es qué información justificaría relacionar el cambio de un ejercicio con una actuación diferente.
Situación hipotética: una persona mejora un ejercicio conocido, pero su lanzamiento no cambia. Se revisan la posición, la secuencia, el implemento y el tiempo disponible del lanzamiento. El contraste no supone que la fuerza sea irrelevante: indica que capacidad y aplicación no son la misma variable.
Pregunta de interpretación: ¿qué enlace falta entre ambas tareas? Puede faltar coordinación específica, una dirección de fuerza útil o práctica suficiente del gesto. También puede haber diferencias en cómo se midió el resultado. Ninguna de esas explicaciones se declara verdadera sin observación adicional.
Registro y progresión: construir una ficha con la capacidad evaluada, la tarea de destino, sus restricciones y las medidas disponibles. Después identificar coincidencias y diferencias mecánicas. El progreso consiste en formular una comparación más precisa, no en añadir ejercicios cada vez más difíciles. La actividad puede conectarse con situaciones de juego en Educación Física, donde las demandas cambian con compañeros, adversarios y reglas.
Del mecanismo a una decisión docente con sentido
Una decisión docente necesita conectar el mecanismo fisiológico con la tarea que desea enseñar. Conocer el reclutamiento aporta criterios para interpretar fuerza y esfuerzo; elegir ejercicios exige además atender al contexto, la experiencia y las restricciones del movimiento. La explicación resulta más útil cuando aclara una decisión que cuando se convierte en etiqueta.
En el extracto editorial de su capítulo sobre transferencia, Duncan French distingue cualidades atléticas de su expresión en el rendimiento deportivo. El desarrollo de una capacidad y su utilización en una tarea requieren una relación específica, no una equivalencia automática (French, 2022). Esa distinción ayuda a conservar la técnica y la situación de práctica dentro del análisis.
En la enseñanza, el objetivo puede ser producir fuerza con control o interpretar cambios de esfuerzo. Los recursos docentes de EDUFISICA pueden apoyar la organización de tareas y seguimiento, adaptados al grupo y al propósito de aprendizaje.
Preguntas frecuentes sobre reclutamiento y unidades motoras
Las preguntas habituales se resuelven mejor separando definición, mecanismo y aplicación. Una respuesta breve puede aclarar un término, pero no convierte el principio de tamaño en una dosificación universal. Para interpretar una situación concreta siguen siendo necesarios el músculo, la tarea, las condiciones del esfuerzo y el método de observación.
¿Qué es el principio de tamaño de Henneman?
Es la organización por la que las unidades de menor umbral tienden a reclutarse antes que las de mayor umbral ante entradas excitadoras comparables. Relaciona propiedades de las motoneuronas con su activación. No significa que todas las tareas reciban entradas idénticas ni establece porcentajes universales de carga para cada tipo de fibra.
¿Qué significa el reclutamiento de unidades motoras?
Significa incorporar a la actividad unidades motoras que antes estaban inactivas. Una unidad reúne la motoneurona alfa y las fibras que inerva. El reclutamiento contribuye a aumentar fuerza, junto con la frecuencia de descarga de unidades ya activas y las condiciones mecánicas de sus fibras; no es sinónimo de hipertrofia.
¿Cómo se reclutan las unidades motoras?
Se incorporan cuando la combinación de entradas y propiedades de la motoneurona permite alcanzar su umbral de descarga. Con entradas comparables, las de menor umbral suelen participar primero. La demanda de fuerza, la rapidez, la fatiga y la tarea modifican el contexto; observar la carga externa no basta para conocer todo el reclutamiento.
¿Cuáles son los 3 tipos de unidades motoras?
Una clasificación funcional distingue unidades lentas, rápidas resistentes a la fatiga y rápidas fatigables. Sus propiedades se relacionan con perfiles de fibras I, IIa y IIx, pero no son categorías idénticas. La clasificación describe respuesta y resistencia relativa; no permite deducir la composición muscular de una persona por su apariencia o deporte.
Referencias bibliográficas
Las referencias permiten distinguir la explicación de los manuales, las revisiones de mecanismos y los estudios realizados en tareas delimitadas. Las páginas indicadas en el texto corresponden a las ediciones citadas. Los trabajos con diseños específicos deben leerse junto con sus participantes, métodos y condiciones antes de trasladar sus resultados a la enseñanza.
- Bompa, T. O., & Buzzichelli, C. A. (2022). Periodization of strength training for sports (4th ed.). Human Kinetics.
- Del Vecchio, A., Casolo, A., Negro, F., Scorcelletti, M., Bazzucchi, I., Enoka, R. M., Felici, F., & Farina, D. (2019). The increase in muscle force after 4 weeks of strength training is mediated by adaptations in motor unit recruitment and rate coding. The Journal of Physiology, 597(7), 1873–1887. https://doi.org/10.1113/JP277250
- Dernoncourt, F., Avrillon, S., Logtens, T., Cattagni, T., Farina, D., & Hug, F. (2025). Flexible control of motor units: Is the multidimensionality of motor unit manifolds a sufficient condition? The Journal of Physiology, 603(8), 2349–2368. https://doi.org/10.1113/JP287857
- Duchateau, J., & Enoka, R. M. (2016). Neural control of lengthening contractions. Journal of Experimental Biology, 219(2), 197–204. https://doi.org/10.1242/jeb.123158
- Enoka, R. M., & Duchateau, J. (2017). Rate coding and the control of muscle force. Cold Spring Harbor Perspectives in Medicine, 7(10), a029702. https://doi.org/10.1101/cshperspect.a029702
- Farina, D., Merletti, R., & Enoka, R. M. (2014). The extraction of neural strategies from the surface EMG: An update. Journal of Applied Physiology, 117(11), 1215–1230. https://doi.org/10.1152/japplphysiol.00162.2014
- Farina, D., Merletti, R., & Enoka, R. M. (2025). The extraction of neural strategies from the surface EMG: 2004–2024. Journal of Applied Physiology, 138(1), 121–135. https://doi.org/10.1152/japplphysiol.00453.2024
- Fomin, R. N., & Collins, C. C. (2022). Electroencephalography and electroneuromyography. In D. N. French & L. Torres Ronda (Eds.), NSCA's essentials of sport science (pp. 191–211). Human Kinetics.
- French, D. N. (2022). Translating athletic qualities into sport performance. In D. Joyce & D. Lewindon (Eds.), High-performance training for sports (2nd ed.). Human Kinetics. Extracto editorial del capítulo 17.
- French, D. N., & Torres Ronda, L. (Eds.). (2022). NSCA's essentials of sport science. Human Kinetics.
- Hug, F., Avrillon, S., Ibáñez, J., & Farina, D. (2023). Common synaptic input, synergies and size principle: Control of spinal motor neurons for movement generation. The Journal of Physiology, 601(1), 11–20. https://doi.org/10.1113/JP283698
- Joyce, D., & Lewindon, D. (Eds.). (2022). High-performance training for sports (2nd ed.). Human Kinetics. Ficha editorial.
- Marshall, N. J., Glaser, J. I., Trautmann, E. M., Amematsro, E. A., Perkins, S. M., Shadlen, M. N., Abbott, L. F., Cunningham, J. P., & Churchland, M. M. (2022). Flexible neural control of motor units. Nature Neuroscience, 25, 1492–1504. https://doi.org/10.1038/s41593-022-01165-8
- Schoenfeld, B. J. (2021). Science and development of muscle hypertrophy (2nd ed.). Human Kinetics.
- Wernbom, M., & Aagaard, P. (2020). Muscle fibre activation and fatigue with low-load blood flow restricted resistance exercise: An integrative physiology review. Acta Physiologica, 228(1), e13302. https://doi.org/10.1111/apha.13302
- Zatsiorsky, V. M., Kraemer, W. J., & Fry, A. C. (2021). Science and practice of strength training (3rd ed.). Human Kinetics.