
Fisiología del ejercicio · Cuerpo, movimiento y adaptación
ATP y metabolismo: cómo se sostiene el trabajo celular durante el ejercicio
Al comenzar un movimiento aumenta la necesidad de transferir energía dentro de las células. El ATP participa directamente en ese trabajo, pero la cantidad disponible no basta para sostener toda la actividad sin renovación. La cuestión central no es cuánto ATP se guarda como si fuera un gran depósito: es cómo se resintetiza mientras se utiliza y cómo se ajustan las contribuciones de diferentes vías a la demanda.
El metabolismo reúne reacciones de transformación, síntesis y degradación. La bioenergética examina sus relaciones con energía y trabajo. Aplicadas al ejercicio, estas ideas conectan una reacción molecular con una tarea realizada por un organismo completo. El modelo permite comprender predominancias sin inventar fronteras en las que un sistema se apaga y otro comienza. [1, pp. 101–124; 2, pp. 117–125, 133–147; 3; 4]
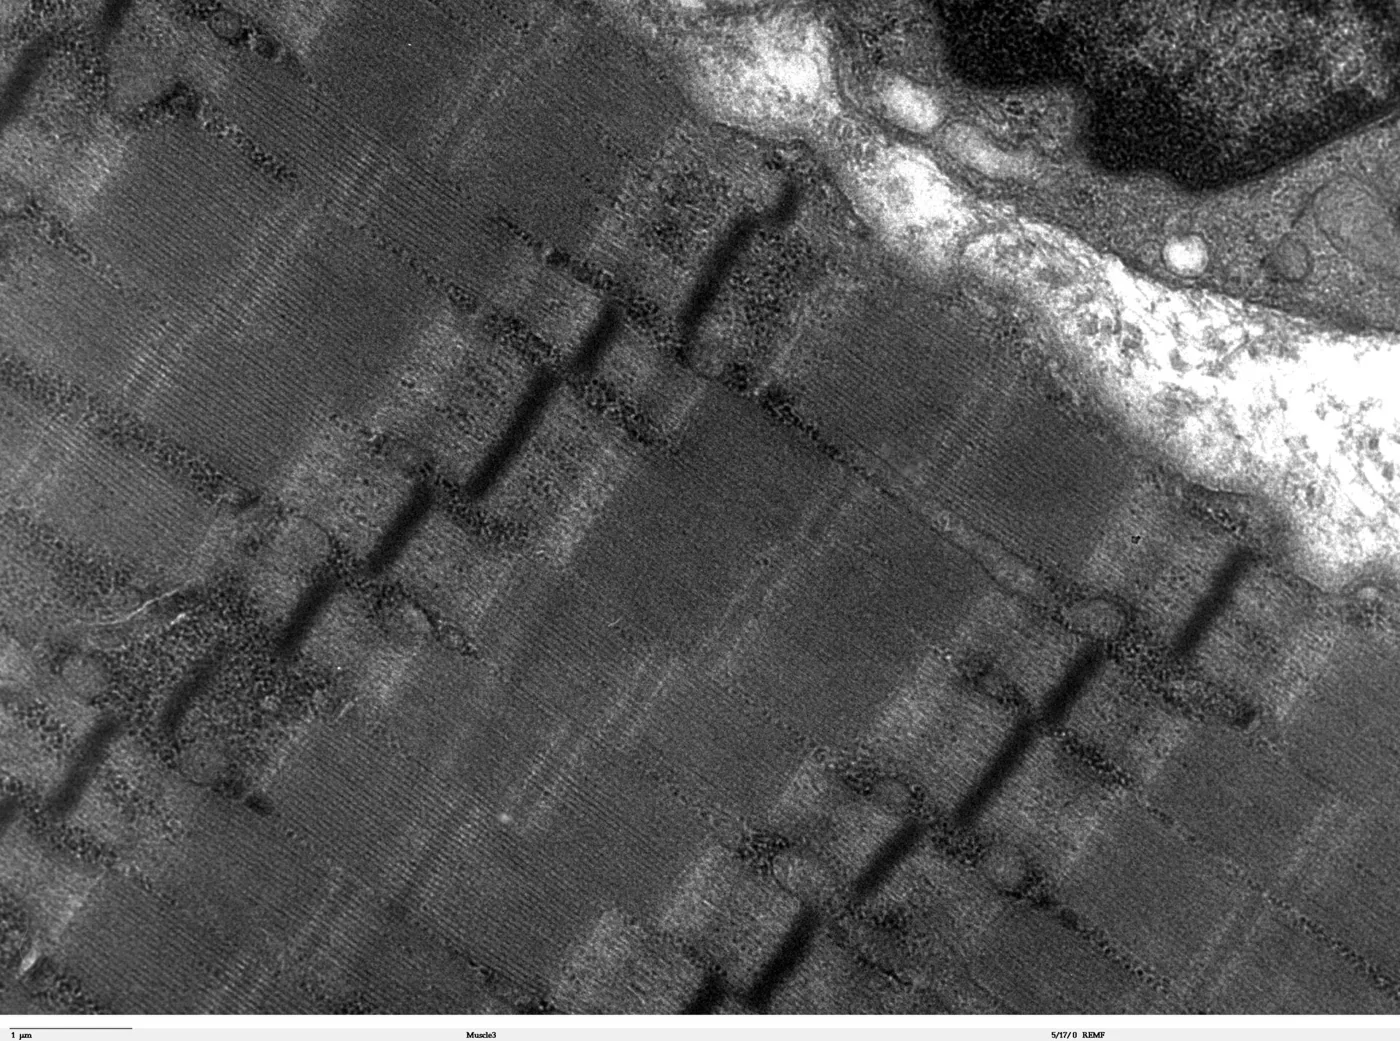
El metabolismo transforma materia y transfiere energía
El catabolismo comprende procesos de degradación, mientras que el anabolismo reúne procesos de síntesis. Ambos pueden ocurrir simultáneamente en una célula y se relacionan mediante materiales, regulación y transferencia energética. La palabra metabolismo no designa únicamente lo que sucede cuando alguien hace ejercicio ni una velocidad fija que pueda calificarse como buena o mala. Incluye el trabajo continuo de mantener estructuras, intercambiar sustancias y responder a señales. [1, p. 101; 2, pp. 117–125]
Una reacción exergónica presenta una disminución de energía libre en las condiciones consideradas; una endergónica requiere un aporte para avanzar. El acoplamiento permite relacionar procesos, de modo que una transformación favorable contribuya a sostener otra. La energía no se crea dentro del músculo. Cambia de forma y se transfiere; parte termina como calor. Por ello, aumentar trabajo mecánico también modifica necesidades de intercambio térmico. [1, pp. 101–103; 2, pp. 117–125]
Las enzimas aceleran reacciones y la organización celular conecta rutas. No convierten cualquier proceso en favorable ni sustituyen la necesidad de sustratos y condiciones apropiadas. Distinguir velocidad de reacción, energía disponible y regulación ayuda a interpretar por qué un cambio puede aumentar una contribución sin cambiar todas las demás del mismo modo. Es una relación entre procesos, no una única perilla que acelera por igual todo el organismo.
El ATP conecta transformaciones con trabajo celular
El trifosfato de adenosina contiene adenina, ribosa y tres grupos fosfato. Su hidrólisis puede producir ADP y fosfato inorgánico, y el proceso global puede acoplarse a trabajo químico, transporte o acción mecánica. No debe explicarse diciendo que romper un enlace por sí mismo crea energía: la reacción completa y la diferencia de energía libre son las que permiten entender la transferencia. Las condiciones celulares afectan esa diferencia. [1, pp. 103–105; 2, pp. 134–135]
En el músculo, el uso de ATP participa en el ciclo de las proteínas contráctiles, el manejo de calcio y el mantenimiento de gradientes. La relajación y la conservación de condiciones internas también requieren trabajo. Así, utilizar energía no equivale únicamente a la fase visible de acortamiento muscular. Otros nucleótidos, como GTP, participan en procesos específicos: el ATP es central en el trabajo estudiado, pero no es la única molécula energética de la célula. [1, pp. 104–105]
La relación con contracción muscular muestra por qué la actividad requiere continuidad en el suministro. Una reserva limitada de ATP no significa que el músculo trabaje solo unos instantes y después espere una recarga completa. Las reacciones de resíntesis operan mientras se utiliza. El análisis debe centrarse en ese flujo y en la respuesta a una demanda que puede aumentar rápidamente.
La demanda modifica señales que regulan las rutas
El uso de ATP cambia las relaciones entre nucleótidos y productos de sus reacciones. ADP, AMP y fosfato inorgánico forman parte de señales vinculadas al estado energético y a la regulación. Estas conexiones favorecen una respuesta coordinada cuando comienza la actividad. También intervienen señales asociadas a la contracción y al contexto hormonal. El sistema no necesita esperar a que se agote toda una reserva para iniciar la participación de otra vía. [1, pp. 105–107, 123–124; 2, pp. 136–137]
Una tasa elevada de demanda puede requerir una contribución rápida que no se sostiene indefinidamente. La cantidad total que puede aportar una vía y la rapidez con que lo hace son propiedades diferentes. Además, la fatiga no debe reducirse a «se acabó el ATP». Su interpretación incluye cambios celulares, regulación, control nervioso y características de la tarea. El organismo puede disminuir rendimiento mientras conserva funciones esenciales. [2, pp. 135–147]
En un ejemplo hipotético de clase, el alumnado distingue dos preguntas sobre una tarea: cuánta energía se necesita durante todo el intervalo y con qué rapidez se requiere en sus aceleraciones. Una respuesta no sustituye la otra. La comparación ayuda a explicar por qué una actividad breve puede ser exigente aunque su gasto total no sea el mayor, y por qué prolongar una tarea modifica las contribuciones sin crear un interruptor temporal.
La fosfocreatina aporta una transferencia rápida
La fosfocreatina puede transferir un grupo fosfato al ADP mediante una reacción catalizada por creatina cinasa, contribuyendo a regenerar ATP. La rapidez de esta ruta resulta relevante cuando aumenta abruptamente la demanda. La reacción se relaciona con el equilibrio entre utilización y recuperación. No implica que otros procesos permanezcan inactivos mientras opera, ni que toda persona conserve un número idéntico de segundos de actividad máxima. [1, pp. 105–107; 2, pp. 136–137]
La adenilato cinasa proporciona otra reacción: dos moléculas de ADP pueden transformarse en una de ATP y una de AMP. Es diferente de utilizar fosfocreatina, aunque ambas contribuyen al manejo de nucleótidos. El AMP también participa en señales reguladoras. Estas reacciones muestran que la disponibilidad se conserva mediante intercambios y que sus productos tienen funciones que exceden una resta de moléculas almacenadas. [2, p. 137]
Durante la recuperación, la resíntesis de fosfocreatina se relaciona con otras vías, incluido el metabolismo oxidativo. La creatina y la creatinina son compuestos distintos; hablar de esta ruta no permite interpretar automáticamente una medición clínica ni prescribe suplementación. Para planificación interesa comprender que las pausas cambian el estado de partida de la siguiente acción. Su efecto debe analizarse dentro de una sesión, sin deducirlo únicamente del nombre del deporte. [1, p. 106; 2, pp. 136–137]
La glucólisis aporta ATP y se conecta con otros destinos
La glucólisis transforma glucosa o productos procedentes del glucógeno a través de una secuencia de reacciones citosólicas. Durante el proceso se sintetiza ATP y se generan intermediarios, incluido piruvato. La ruta no requiere utilizar oxígeno directamente en cada reacción. Eso no significa que solo opere cuando no hay oxígeno en la célula. Puede participar junto con una actividad oxidativa importante y sus productos pueden continuar por diferentes destinos. [1, pp. 107–112; 2, pp. 141–147]
La conversión de piruvato a lactato permite regenerar NAD+, necesario para mantener determinadas reacciones. El lactato no debe presentarse exclusivamente como residuo tóxico. Puede transportarse y utilizarse en otros procesos, incluidos usos oxidativos y formación de glucosa. Su concentración representa el equilibrio entre aparición y utilización, no una lectura directa de toda la energía aportada por glucólisis. La interpretación de lactato y umbrales desarrolla estas relaciones. [2, pp. 146–147]
La terminología requiere cuidado. «Anaeróbico» puede señalar una contribución que no depende directamente del oxígeno, pero no describe una célula completamente privada de él. «Láctico» no demuestra que el lactato sea la causa única de fatiga o de acidez. Los cambios de pH y rendimiento requieren un análisis más amplio. Separar estos conceptos permite explicar esfuerzos intensos sin convertir una molécula en culpable de todo lo que ocurre. [2, pp. 141–147]
La fosforilación oxidativa conecta electrones, gradientes y ATP
Diferentes rutas aportan moléculas y electrones al metabolismo mitocondrial. El ciclo del ácido cítrico, también llamado ciclo de Krebs, contribuye a generar transportadores reducidos como NADH y FADH2. La cadena de transporte de electrones relaciona sus transferencias con la formación de un gradiente electroquímico de protones. La ATP sintasa utiliza ese gradiente para acoplar el flujo de protones a la síntesis de ATP. [1, pp. 110–112; 2, pp. 137–139]
El oxígeno cumple una función de aceptor final de electrones y participa en la formación de agua. Por ello, el metabolismo oxidativo se vincula con ventilación, intercambio de gases, circulación y utilización celular. Ninguna de esas etapas equivale por sí sola a todo el proceso. La relación con transporte de oxígeno en sangre muestra que hablar del músculo aislado deja fuera parte del suministro del organismo.
Glucosa, ácidos grasos y otros sustratos pueden contribuir a rutas relacionadas con oxidación, con diferencias en pasos y tasas. La cantidad de ATP estimada por molécula depende de supuestos y condiciones, por lo que una cifra memorizada no describe directamente una sesión. Para explicar una tarea suele resultar más útil entender continuidad y velocidad de respuesta. El artículo sobre sustratos del ejercicio conecta esas diferencias con disponibilidad y regulación. [1, pp. 112–122; 2, pp. 141–146]
Las contribuciones cambian desde el comienzo
La revisión de Hargreaves y Spriet describe una resíntesis de ATP basada en fosfocreatina, metabolismo de carbohidratos y oxidación de sustratos, con contribuciones relacionadas con intensidad y duración. Ese planteamiento no corresponde a una escalera que obliga a terminar una etapa antes de iniciar otra. Al cambiar la exigencia puede cambiar la proporción de participación, mientras que varias rutas continúan contribuyendo. [3]
Gastin y Suppiah revisaron estimaciones de contribución aeróbica y anaeróbica en ejercicio máximo. Su síntesis integra estudios con métodos diferentes y muestra una participación aeróbica importante en esfuerzos breves. Los resultados agregados no fijan un instante de cambio válido para cada persona ni para tareas intermitentes. Las estimaciones pertenecen a actividades, poblaciones y procedimientos determinados. Convertirlas en fronteras universales omite precisamente esas condiciones. [4]
La distinción entre predominio y exclusividad permite usar etiquetas sin deformar el mecanismo. Una acción puede exigir una contribución rápida importante y mantener participación oxidativa. Una recuperación puede ser de baja intensidad y tener un papel decisivo en la siguiente repetición. Para analizar una sesión conviene describir sus cambios, en lugar de asignar todo un deporte a una sola vía. Esa aplicación se desarrolla en planificación del continuo energético.
Un modelo integrado para comprender una tarea
La tabla relaciona rutas con preguntas prácticas, sin adjudicar tiempos fijos ni porcentajes imaginarios. Las características describen mecanismos generales; una contribución exacta requiere mediciones y supuestos. Su utilidad consiste en orientar la lectura de una tarea: qué demanda cambia, qué recuperación se permite y qué variables se observan. La tarea real sigue incluyendo decisiones, coordinación y condiciones del entorno que la bioenergética no resume por completo.
En un ejemplo hipotético, una actividad combina desplazamientos suaves con aceleraciones para alcanzar una zona. Las aceleraciones elevan la tasa de demanda; los intervalos entre ellas modifican la recuperación. El mismo tiempo total puede contener distribuciones diferentes de trabajo. Comparar esas versiones permite explicar una contribución variable sin estimar ATP individual ni exigir pruebas máximas. El modelo sirve para interpretar, no para sustituir la observación.
Comprender el ATP ofrece una conexión entre biología celular y educación física. La continuidad del movimiento depende de rutas coordinadas, y la continuidad del análisis depende de distinguir reacción, tejido y organismo. El conocimiento gana utilidad cuando explica esas relaciones con precisión: transferencia energética, regulación y condiciones de la tarea. Una etiqueta ayuda a describir predominancias; no debe convertirse en una frontera que la fisiología no establece.
| Proceso | Característica relevante | Pregunta para una tarea |
|---|---|---|
| Transferencia desde fosfocreatina | Resíntesis rápida y recuperación vinculada a otras vías | ¿Cómo se distribuyen las acciones y las pausas? |
| Glucólisis | Aporte citosólico conectado a destinos de piruvato y lactato | ¿Qué tasas de demanda se mantienen o repiten? |
| Fosforilación oxidativa | Dependencia de transferencias electrónicas y oxígeno | ¿Cómo cambia la continuidad y la recuperación? |
| Regulación conjunta | Contribuciones simultáneas y variables | ¿Qué condiciones hacen incompleta una etiqueta única? |
Bibliografía
- León Ariza, H. H. (2026). Fisiología del ejercicio: bases para la comprensión del rendimiento y el ejercicio físico para la salud. Universidad de La Sabana. Consultar fuente
- McArdle, W. D., Katch, F. I., y Katch, V. L. (2015). Fisiología del ejercicio: nutrición, rendimiento y salud (8.ª ed. española). Wolters Kluwer Health España. ISBN 978-84-16004-70-6.
- Hargreaves, M., y Spriet, L. L. (2020). Skeletal muscle energy metabolism during exercise. Nature Metabolism, 2, 817–828. Consultar fuente
- Gastin, P. B., y Suppiah, H. T. (2026). Anaerobic and aerobic energy system contribution during maximal exercise: a systematic review. Sports Medicine. Consultar fuente