
Fisiología del ejercicio · Cuerpo, movimiento y adaptación
Unión neuromuscular y contracción: de la señal nerviosa a la fuerza
Para mover una mano, una señal nerviosa debe convertirse en una respuesta de las fibras musculares. Esa transformación ocurre mediante una secuencia de fenómenos eléctricos, químicos y mecánicos. La unión neuromuscular conecta la motoneurona con la fibra; dentro de esta, el calcio regula la interacción entre proteínas capaces de producir fuerza.
Comprender la secuencia permite distinguir activación, contracción y movimiento. Un músculo puede desarrollar tensión sin acortarse, y una señal eléctrica no informa por sí sola de la fuerza que llegará a una articulación. La explicación requiere seguir el proceso y reconocer dónde intervienen la energía, la estructura del tejido y las condiciones de la tarea.
Qué tiene de particular el músculo esquelético
El organismo posee músculo esquelético, cardíaco y liso, con diferencias de estructura y regulación. El esquelético está organizado para producir fuerza que participa en movimiento, postura y otras funciones, incluida la respiración. Aunque muchas de sus acciones se relacionan con una intención consciente, también interviene en respuestas reflejas y en tareas rítmicas donde no se decide cada contracción. Por tanto, llamarlo voluntario expresa una característica general, no una regla que excluya la regulación automática. [1, pp. 401–404; 2, pp. 356–367]
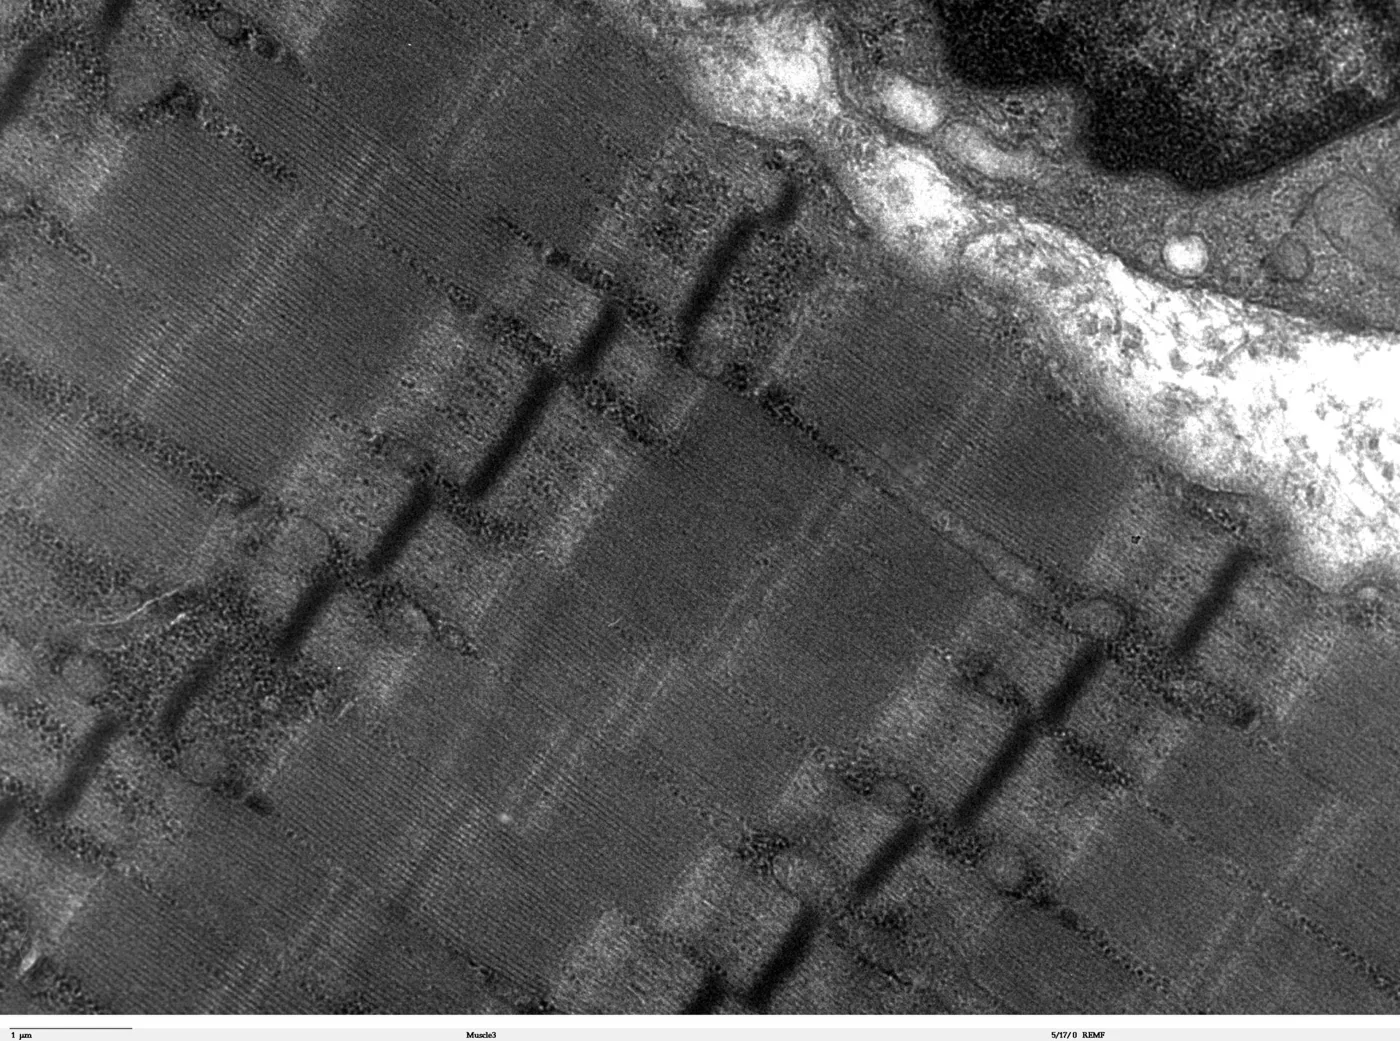
Una fibra muscular es una célula alargada que contiene miofibrillas, numerosos núcleos y estructuras especializadas. Su membrana se denomina sarcolema; el retículo sarcoplásmico almacena calcio; los túbulos transversos llevan cambios eléctricos hacia el interior. La organización en fascículos y la continuidad con tejido conectivo permiten que muchas fibras contribuyan a una fuerza común. Esta descripción evita confundir fibra, fascículo y músculo entero. Son escalas distintas, y un cambio en una de ellas no describe necesariamente todo el comportamiento del órgano. La hipertrofia, por ejemplo, debe analizarse con métodos que indiquen qué estructura está cambiando.
La unión neuromuscular es una sinapsis especializada
Una motoneurona envía su axón hacia fibras musculares esqueléticas; cada contacto incluye una terminación nerviosa, un espacio sináptico y una región especializada de la membrana muscular. Esa organización se denomina unión neuromuscular. La región postsináptica, o placa motora, posee receptores y pliegues que favorecen la transmisión. La unidad motora abarca la motoneurona y el conjunto de fibras que inerva, no únicamente un contacto sináptico. [1, pp. 385–387; 2, pp. 391–398]
El potencial de acción que llega por el nervio no cruza el espacio sináptico como si ambas membranas fueran un cable continuo. En la terminación, la despolarización favorece la apertura de canales de calcio. La entrada de calcio participa en la fusión de vesículas que liberan acetilcolina. Esta molécula es el neurotransmisor que actúa sobre la membrana muscular. Conviene distinguir ese calcio presináptico del que se liberará después dentro de la fibra: intervienen en etapas diferentes. Reconocer la diferencia evita una explicación donde una misma nube de calcio atraviesa sucesivamente nervio, sinapsis y sarcómero.
De la acetilcolina a un nuevo potencial de acción
La acetilcolina se une a receptores nicotínicos musculares, que funcionan como canales activados por ligando. El paso de cationes produce una despolarización local de la placa motora. Si alcanza condiciones suficientes, se activan canales dependientes de voltaje y se genera un potencial de acción que se propaga por el sarcolema. El potencial de placa y el potencial de acción muscular están relacionados, pero no son el mismo fenómeno. [1, pp. 385–387; 2, pp. 393–398]
La transmisión también necesita terminar. La acetilcolinesterasa hidroliza la acetilcolina en el espacio sináptico; parte de sus componentes puede reutilizarse para sintetizar neurotransmisor. Esta regulación limita la permanencia de la señal y permite nuevas transmisiones. La cantidad de fuerza no se explica simplemente por imaginar más acetilcolina en cada contacto. También importan cuántas unidades motoras participan, cómo descargan y qué respuesta produce el aparato contráctil. En una explicación del ejercicio saludable, no resulta adecuado presentar la unión neuromuscular como el lugar que siempre falla cuando alguien se cansa: la fatiga puede involucrar mecanismos diferentes y depende de la tarea.
El acoplamiento entre excitación y contracción
El potencial de acción se propaga por los túbulos T y activa mecanismos que conectan el cambio de voltaje con la liberación de calcio desde el retículo sarcoplásmico. En músculo esquelético intervienen sensores de voltaje, habitualmente denominados receptores de dihidropiridina, y canales de rianodina del retículo. El resultado es un aumento transitorio del calcio en el interior de la fibra. Este enlace entre señal eléctrica y respuesta contráctil se conoce como acoplamiento excitación-contracción. [1, pp. 411–413; 2, pp. 367–374]
El calcio se une a la troponina y modifica la relación del complejo regulador con la tropomiosina. Así aumenta la disponibilidad de sitios de interacción entre actina y miosina. No es el calcio el que tira de los filamentos: modifica las condiciones que permiten a las proteínas motoras generar fuerza. Tampoco basta con mencionar su concentración sanguínea para explicar una contracción. El control local dentro de la fibra y el intercambio con el retículo son esenciales. Esta distinción permite relacionar la fisiología celular con la nutrición sin sugerir que ingerir más calcio aumente automáticamente la fuerza de una persona.
Sarcómeros y ciclo de los puentes cruzados
Los sarcómeros son unidades repetidas de las miofibrillas. Contienen filamentos delgados y gruesos, junto con proteínas estructurales y reguladoras. En el modelo de filamentos deslizantes, la interacción de cabezas de miosina con actina produce desplazamiento relativo de los filamentos o desarrolla tensión contra una resistencia. Los filamentos no necesitan acortarse en sí mismos para que cambie la longitud del sarcómero. La disposición y el grado de solapamiento condicionan la capacidad de producir fuerza. [1, pp. 404–415; 2, pp. 360–374]
El ATP participa en el ciclo de puentes cruzados: su unión facilita separar miosina de actina, y su hidrólisis contribuye a preparar la cabeza para otra interacción. Los cambios asociados a liberación de productos de la hidrólisis se relacionan con generación de fuerza. Muchas cabezas actúan de forma coordinada estadísticamente, aunque no todas realizan el mismo paso al mismo instante. La fuerza total depende de la actividad de numerosas estructuras, de su longitud y de la velocidad de la acción. Por eso, un dibujo de un único puente cruzado ayuda a comprender el mecanismo, pero no predice por sí solo el resultado de un salto.
Relajarse también tiene un costo energético
Cuando disminuye la activación, bombas dependientes de ATP favorecen el retorno del calcio al retículo sarcoplásmico. Al reducirse el calcio disponible, se modifica la regulación de los sitios de interacción y disminuye la activación contráctil. La relajación no es simplemente apagar la fuerza sin intervención celular: requiere procesos de transporte y mantenimiento de condiciones internas. Las bombas de calcio, conocidas como SERCA, forman parte de esa regulación. [1, pp. 415–416; 2, pp. 367–374]
El ATP también participa en mantenimiento de gradientes iónicos y en otras funciones de la célula. Sin embargo, durante el ejercicio la fatiga no puede explicarse como una caída inevitable del ATP hasta cero. Los mecanismos que resintetizan ATP actúan continuamente, y el rendimiento puede disminuir mientras existe ATP disponible. Conviene enlazar esta explicación con los sistemas energéticos: su actividad sostiene tanto el aparato contráctil como la regulación celular. Una molestia, un calambre o un episodio de debilidad tampoco identifican por sí solos qué mecanismo ha cambiado. La fisiología general permite comprender posibilidades, pero no reemplaza una evaluación clínica cuando hace falta.
Contracción no significa siempre acortamiento
Un músculo activado puede acortarse, mantenerse aproximadamente a la misma longitud o alargarse mientras desarrolla fuerza. Estas condiciones se describen habitualmente como acciones concéntricas, isométricas y excéntricas. La denominación depende de qué estructura y fase se analizan; el desplazamiento externo de una articulación no revela todos los cambios internos de fibras y tendón. Además, una misma tarea puede combinar acciones distintas entre músculos y momentos del movimiento. [2, pp. 509–520]
El tejido conectivo transmite fuerzas dentro del músculo y hacia el tendón, mientras la geometría del sistema musculoesquelético modifica su efecto en la articulación. La longitud muscular, la orientación de fibras y los brazos de momento importan. La relación fuerza-velocidad también cambia entre condiciones de acortamiento y alargamiento. Todo ello explica por qué comparar dos ejercicios únicamente por actividad eléctrica o por sensación de esfuerzo ofrece una imagen incompleta. La fuerza expresada pertenece a una tarea concreta. Antes de interpretar una diferencia conviene preguntar qué posición se utilizó, qué resistencia actuó y cómo se definió el resultado.
| Etapa | Fenómeno principal | Distinción necesaria |
|---|---|---|
| Transmisión sináptica | Acetilcolina actúa sobre receptores musculares. | No es todavía el ciclo actina-miosina. |
| Excitación-contracción | La señal eléctrica favorece liberación interna de calcio. | Calcio presináptico y muscular cumplen funciones distintas. |
| Producción de fuerza | Interactúan proteínas contráctiles con ATP. | Tensión no exige siempre acortamiento externo. |
| Transmisión mecánica | Tejido conectivo y tendón transmiten fuerzas. | Fuerza de una fibra y resultado articular no son equivalentes. |
| Relajación | Se reduce calcio disponible mediante transporte activo. | También requiere energía. |
Ejercicio y envejecimiento de la unión neuromuscular
La unión neuromuscular puede experimentar cambios estructurales y funcionales con el envejecimiento. Wang y colaboradores revisaron investigaciones sobre ejercicio y degeneración de esa unión, considerando características presinápticas y postsinápticas. Los resultados aportan una base para estudiar cómo la actividad modifica el mantenimiento de la conexión nervio-músculo. Sin embargo, una parte importante de los trabajos incluidos procede de modelos animales. [3]
Este límite importa al interpretar sus aplicaciones. Una variación observada en terminaciones o receptores de animales no demuestra por sí sola cuánto mejorará una persona mayor al realizar un programa concreto. Tampoco permite prometer que el ejercicio impedirá cualquier alteración neuromuscular. En humanos intervienen actividad habitual, enfermedades, nutrición y otras condiciones. La revisión sirve para comprender mecanismos y preguntas de investigación, no como una receta de tratamiento. El texto de Smith y colaboradores sitúa la función muscular dentro de una adaptación más amplia, donde metabolismo, señales celulares y estructura se relacionan. La unión neuromuscular es una pieza relevante de ese sistema, pero no la única. [4]
Un ejemplo hipotético para seguir toda la cadena
Imaginemos que una estudiante sostiene un objeto liviano con el codo flexionado. La intención se organiza en redes del sistema nervioso, se transmite por motoneuronas y alcanza las uniones neuromusculares. Las fibras reciben la señal, liberan calcio internamente y generan tensión. Si el objeto permanece quieto, eso no significa que el músculo esté inactivo: desarrolla fuerza para equilibrar las exigencias de la posición.
Cuando el objeto se eleva lentamente, cambian las relaciones entre fuerza, longitud y movimiento. Si después se baja con control, algunos músculos pueden alargarse mientras siguen activos. El ejemplo es hipotético y no permite conocer cuántas fibras participaron ni medir la actividad de cada etapa. Su utilidad está en conectar escalas sin confundirlas: decisión, transmisión nerviosa, regulación celular y resultado mecánico. Un análisis completo de la acción necesita considerar todas ellas, además de las condiciones externas. La contracción muscular deja así de parecer una explicación única y pasa a entenderse como un proceso integrado, capaz de producir resultados distintos según la tarea.
Bibliografía
- León Ariza, H. H. (2026). Fisiología del ejercicio: bases para la comprensión del rendimiento y el ejercicio físico para la salud. Universidad de La Sabana. Consultar fuente
- McArdle, W. D., Katch, F. I., y Katch, V. L. (2015). Fisiología del ejercicio: nutrición, rendimiento y salud (8.ª ed.). Wolters Kluwer Health España. ISBN 978-84-16004-70-6.
- Wang Q, Cui C, Zhang N, Lin W, Chai S, Chow SK, Wong RMY, Hu Y, Law SW, Cheung WH. (2024). Effects of physical exercise on neuromuscular junction degeneration during ageing: A systematic review. Journal of orthopaedic translation, 46, 91-102. https://doi.org/10.1016/j.jot.2024.03.007 Consultar fuente
- Jonathon A. B. Smith; Kevin A. Murach; Kenneth A. Dyar; Juleen R. Zierath (2023). Exercise metabolism and adaptation in skeletal muscle. Nature Reviews Molecular Cell Biology, 24(9), 607-632. https://doi.org/10.1038/s41580-023-00606-x Consultar fuente