
Fisiología del ejercicio · Cuerpo, movimiento y adaptación
Sangre y transporte de oxígeno durante el ejercicio: hemoglobina, CO2 y entrega a los tejidos
El oxígeno que atraviesa el pulmón todavía debe llegar a los tejidos y utilizarse en ellos. La sangre hace posible gran parte de ese transporte, pero también distribuye nutrientes, señales y calor, y recoge productos que necesitan otro destino. Durante el ejercicio cambia cuánto circula por minuto y cómo se reparte, mientras el músculo aumenta la extracción de oxígeno. El rendimiento depende de ese conjunto, no de una cifra de saturación aislada. [1, pp. 243, 252–257; 2, pp. 278–282].
Para comprenderlo conviene separar tres preguntas: qué contiene la sangre, cuánto gas puede transportar y qué cantidad entrega a un tejido. Esa separación explica por qué hemoglobina, hematocrito, hierro y ferritina no son intercambiables, y por qué una medición aparentemente tranquilizadora puede dejar sin responder otras partes del sistema.
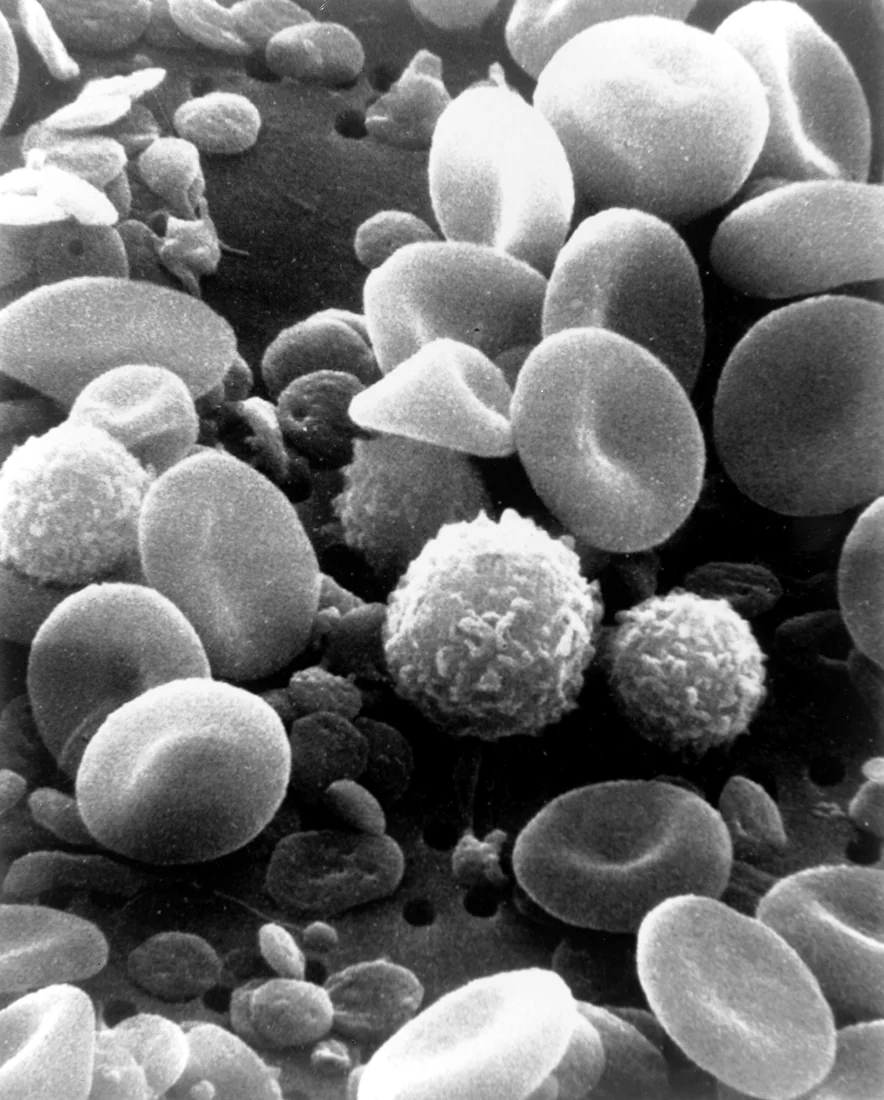
Plasma y elementos formes tienen funciones diferentes
El plasma es la porción líquida de la sangre y contiene agua, proteínas y numerosos solutos. Transporta nutrientes, hormonas y productos metabólicos, y participa en mantener condiciones del medio interno. Los elementos formes incluyen eritrocitos, leucocitos y plaquetas. No todos cumplen la misma tarea: describir sangre como una mezcla de glóbulos rojos deja fuera funciones esenciales de defensa y hemostasia. [1, pp. 243–244, 252].
Los eritrocitos maduros contienen hemoglobina y presentan una organización que facilita atravesar vasos pequeños. Su deformabilidad importa para el flujo capilar. La ausencia de mitocondrias en los eritrocitos maduros distingue su metabolismo del de una fibra muscular: transportar oxígeno no significa utilizarlo mediante respiración mitocondrial. La circulación renueva constantemente estas células a través de producción y eliminación. [1, pp. 244–246; 2, p. 281].
Los leucocitos participan en defensa y regulación inmunitaria. Las plaquetas son fragmentos celulares que contribuyen a la hemostasia junto con otros componentes. El organismo necesita conservar circulación y capacidad de responder a lesiones sin convertir toda sangre circulante en un coágulo. Para la fisiología del ejercicio basta aquí reconocer que oxigenación es una función importante de la sangre, aunque no agota su papel. [1, p. 252].
Producir eritrocitos no equivale a concentrarlos
La eritropoyesis es la producción de glóbulos rojos, regulada en parte por eritropoyetina, una hormona producida principalmente por el riñón en respuesta a señales de disponibilidad de oxígeno. La formación celular también necesita recursos, como hierro y vitaminas pertinentes. La regulación responde a condiciones biológicas; no implica que añadir un recurso sin deficiencia aumente indefinidamente una función útil. [1, pp. 245–246].
El hematocrito expresa la proporción del volumen sanguíneo ocupada por eritrocitos. La concentración de hemoglobina indica una cantidad por volumen de sangre. Ambas pueden cambiar si varía el volumen plasmático, incluso sin una modificación equivalente de la masa total de glóbulos rojos. Por eso concentración y cantidad total son preguntas distintas. Esta diferencia resulta importante al interpretar adaptación, hidratación y resultados de laboratorio. [1, pp. 245, 272; 3].
En personas entrenadas puede existir expansión plasmática que reduzca algunas concentraciones sin representar automáticamente una deficiencia patológica. Sin embargo, invocar una supuesta «anemia del deportista» tampoco permite descartar una anemia real. La interpretación necesita datos y evaluación adecuados. No se diagnostica anemia con un único porcentaje universal de hematocrito ni observando cansancio después de una clase. [3].
Presión, saturación y contenido describen aspectos distintos
El oxígeno viaja en una pequeña proporción disuelto y, principalmente, unido de manera reversible a hemoglobina. La presión parcial refleja el gas disuelto; la saturación señala la ocupación relativa de los sitios disponibles; el contenido expresa la cantidad transportada por volumen de sangre. El vínculo entre estas medidas no elimina sus diferencias. Tener una saturación alta no informa por sí solo cuánta hemoglobina existe. [1, pp. 252–254; 2, pp. 272, 278].
Ejemplo hipotético: dos muestras presentan igual saturación, pero una contiene menos hemoglobina por decilitro. La parte del oxígeno ligada a hemoglobina será menor en esa muestra, aun si el porcentaje de ocupación coincide. El ejemplo no corresponde a personas reales y no ofrece un criterio diagnóstico; muestra por qué comparar porcentajes sin conocer la capacidad de transporte puede llevar a una conclusión equivocada. [2, p. 278].
La curva de disociación de la oxihemoglobina tiene forma sigmoidea por la unión cooperativa del oxígeno. Su forma permite interpretar cómo cambia la saturación frente a distintas presiones y por qué cargar oxígeno en el pulmón y liberarlo en tejidos son funciones complementarias. La curva no es una línea recta ni demuestra que aumentar presión produzca siempre un aumento equivalente de contenido. [2, pp. 278–280].
| Medida | Pregunta que responde | Pregunta que deja abierta |
|---|---|---|
| Presión parcial de O2 | ¿Qué presión representa el gas disuelto? | ¿Cuánto oxígeno total viaja unido a hemoglobina? |
| Saturación | ¿Qué proporción de sitios está ocupada? | ¿Cuánta hemoglobina hay por volumen? |
| Contenido arterial | ¿Cuánto O2 transporta una cantidad de sangre? | ¿Qué flujo llega al tejido? |
| Entrega de O2 | ¿Qué aporte resulta de contenido y flujo? | ¿Cuánto utiliza y extrae el tejido? |
| Ferritina | ¿Qué información aporta sobre reservas de hierro, con sus límites? | ¿Existe anemia o una mejora automática de rendimiento? |
Del aire a la mitocondria: entrega y utilización
La cascada de oxígeno describe cambios de presión parcial desde el ambiente hasta los lugares de utilización celular. Humidificación, mezcla alveolar, intercambio y extracción tisular contribuyen a ese recorrido. No significa que el oxígeno caiga por gravedad ni que todas las etapas tengan valores iguales en cualquier altitud. Cada paso necesita distinguir disponibilidad, gradiente y mecanismo de transporte. [1, pp. 261–262; 2, pp. 270–274, 278].
En los tejidos activos, cambios de CO2 y protones reducen la afinidad de hemoglobina por oxígeno y favorecen su liberación, relación conocida como efecto Bohr. La temperatura también modifica la curva. No debe confundirse con el efecto Haldane, que relaciona el estado de oxigenación de hemoglobina con su capacidad para transportar CO2 y protones. Ambos contribuyen a integrar intercambio y metabolismo, pero describen relaciones distintas. [2, pp. 280, 283].
La mioglobina es una proteína del músculo con propiedades de unión al oxígeno diferentes de las de la hemoglobina. El músculo también necesita red capilar, difusión y capacidad mitocondrial. El consumo de oxígeno del organismo resulta del gasto cardíaco y de la diferencia de contenido entre sangre arterial y venosa mixta, relación del principio de Fick. No debe confundirse con la ley de difusión de Fick ni reducirse a frecuencia cardíaca. [1, pp. 257, 261; 2, pp. 281–282, 343].
El CO2 viaja de varias formas
El dióxido de carbono producido en los tejidos pasa a la sangre y puede transportarse disuelto, unido a proteínas o, en gran parte, como bicarbonato. La anhidrasa carbónica de los eritrocitos facilita la reacción reversible con agua. La hemoglobina también amortigua protones y participa en el transporte. El recorrido de CO2 no es simplemente el mismo mecanismo del oxígeno funcionando al revés. [1, pp. 262–264; 2, pp. 282–283].
El bicarbonato puede intercambiarse a través de la membrana eritrocitaria, con movimientos de cloruro que contribuyen al equilibrio iónico. Al pasar por el pulmón, las condiciones favorecen reconstruir CO2 y eliminarlo hacia el alvéolo. La oxigenación de hemoglobina facilita parte de esa descarga mediante el efecto Haldane. Esta interacción conecta gases, sangre y regulación del pH. [2, pp. 282–283].
Producir más CO2 durante ejercicio no significa conservarlo obligatoriamente en la sangre. La ventilación puede aumentar y acompañar la demanda. Presión de CO2, producción y eliminación deben leerse juntas. Del mismo modo, no se pretende eliminar todo el CO2 del organismo: participa en relaciones químicas y mecanismos de regulación. El intercambio alveolar completa la explicación del recorrido. [2, pp. 274, 286–289].
La sangre debe circular para entregar lo que transporta
Hemorreología designa el estudio del comportamiento del flujo sanguíneo y sus propiedades. La sangre no se comporta exactamente como agua en un tubo rígido: intervienen células deformables, proteínas, hematocrito y condiciones del vaso. La viscosidad importa, pero también presión, calibre vascular y distribución. Una explicación que solo aumente glóbulos rojos y olvide cómo circulan está incompleta. [1, p. 268; 2, pp. 572–573].
La entrega a un tejido combina contenido de oxígeno y flujo local. Durante ejercicio se redistribuye parte del gasto cardíaco y puede aumentar la extracción muscular. Por eso no basta con «tener más oxígeno en sangre»: debe llegar en un flujo adecuado y atravesar las etapas de utilización. La respuesta cardiovascular desarrolla estos ajustes. [1, pp. 257, 291, 310].
Esta perspectiva también ayuda a comprender por qué la manipulación sanguínea no es una mejora inocua del transporte. Cambiar masa celular o propiedades del medio puede afectar otras relaciones y generar riesgos. El artículo sobre dopaje sanguíneo aborda el problema desde fisiología, protección de la salud y reglas deportivas, sin explicar procedimientos de utilización. [2, pp. 572–573].
Hierro, monóxido de carbono y pruebas requieren contexto
El hierro participa en hemoglobina, mioglobina y otras funciones. Ferritina, concentración de hemoglobina y masa eritrocitaria no son nombres distintos del mismo dato. La revisión sistemática de 2024 sobre suplementación oral en deportistas muestra que el estado basal y los resultados analizados importan; no demuestra una mejora general significativa del VO2máx con suplementación. Una posible deficiencia debe evaluarse, no suponerse por cansancio o corregirse con una dosis encontrada en internet. [3].
El monóxido de carbono, CO, es distinto del dióxido de carbono, CO2. Puede unirse con gran afinidad a hemoglobina y comprometer el transporte y la liberación de oxígeno. La exposición por combustión es un problema tóxico y no una estrategia respiratoria para el ejercicio. Esta diferencia de una letra cambia radicalmente la interpretación del gas. [1, p. 266].
Los gases arteriales y otras pruebas aportan información sobre presión de gases y equilibrio ácido-base, pero deben interpretarse en su contexto clínico. No es adecuado copiar valores de reposo y declarar patológico cualquier cambio durante esfuerzo. Propuesta didáctica: construir una ficha ficticia con presión, saturación, contenido y flujo, e indicar qué preguntas resuelve cada variable. La calidad de la explicación reside en conservar sus límites, no en diagnosticar a partir del esquema. [1, p. 266; 2, pp. 272–283].
Bibliografía
- León Ariza, H. H. (2026). Fisiología del ejercicio: bases para la comprensión del rendimiento y el ejercicio físico para la salud. Universidad de La Sabana. https://doi.org/10.5294/978-958-12-0764-0 Consultar fuente
- McArdle, W. D., Katch, F. I., y Katch, V. L. (2015). Fisiología del ejercicio: nutrición, rendimiento y salud (8.ª ed.). Wolters Kluwer Health España. Consultar fuente
- Šmid AN, Golja P, Hadžić V, Abazović E, Drole K, Paravlic AH. (2024). Effects of Oral Iron Supplementation on Blood Iron Status in Athletes: A Systematic Review, Meta-Analysis and Meta-Regression of Randomized Controlled Trials. Sports Med, 54(5), 1231-1247. https://doi.org/10.1007/s40279-024-01992-8 Consultar fuente