
Fisiología del ejercicio · Cuerpo, movimiento y adaptación
Fibras musculares y reclutamiento motor: diversidad, fuerza y entrenamiento
Las fibras musculares no presentan todas las mismas propiedades. Algunas sostienen actividad prolongada con alta capacidad oxidativa; otras desarrollan respuestas rápidas y se relacionan con exigencias intensas. Esa diversidad contribuye a la función del músculo, pero no divide a las personas en dos categorías simples, lentas o rápidas.
El resultado de un movimiento depende también de cómo el sistema nervioso activa las unidades motoras, de la estructura del músculo y de la tarea. Por eso, conocer los tipos de fibras ayuda a explicar el ejercicio siempre que no se utilicen como destino biológico ni como una etiqueta que sustituya la evaluación del rendimiento.
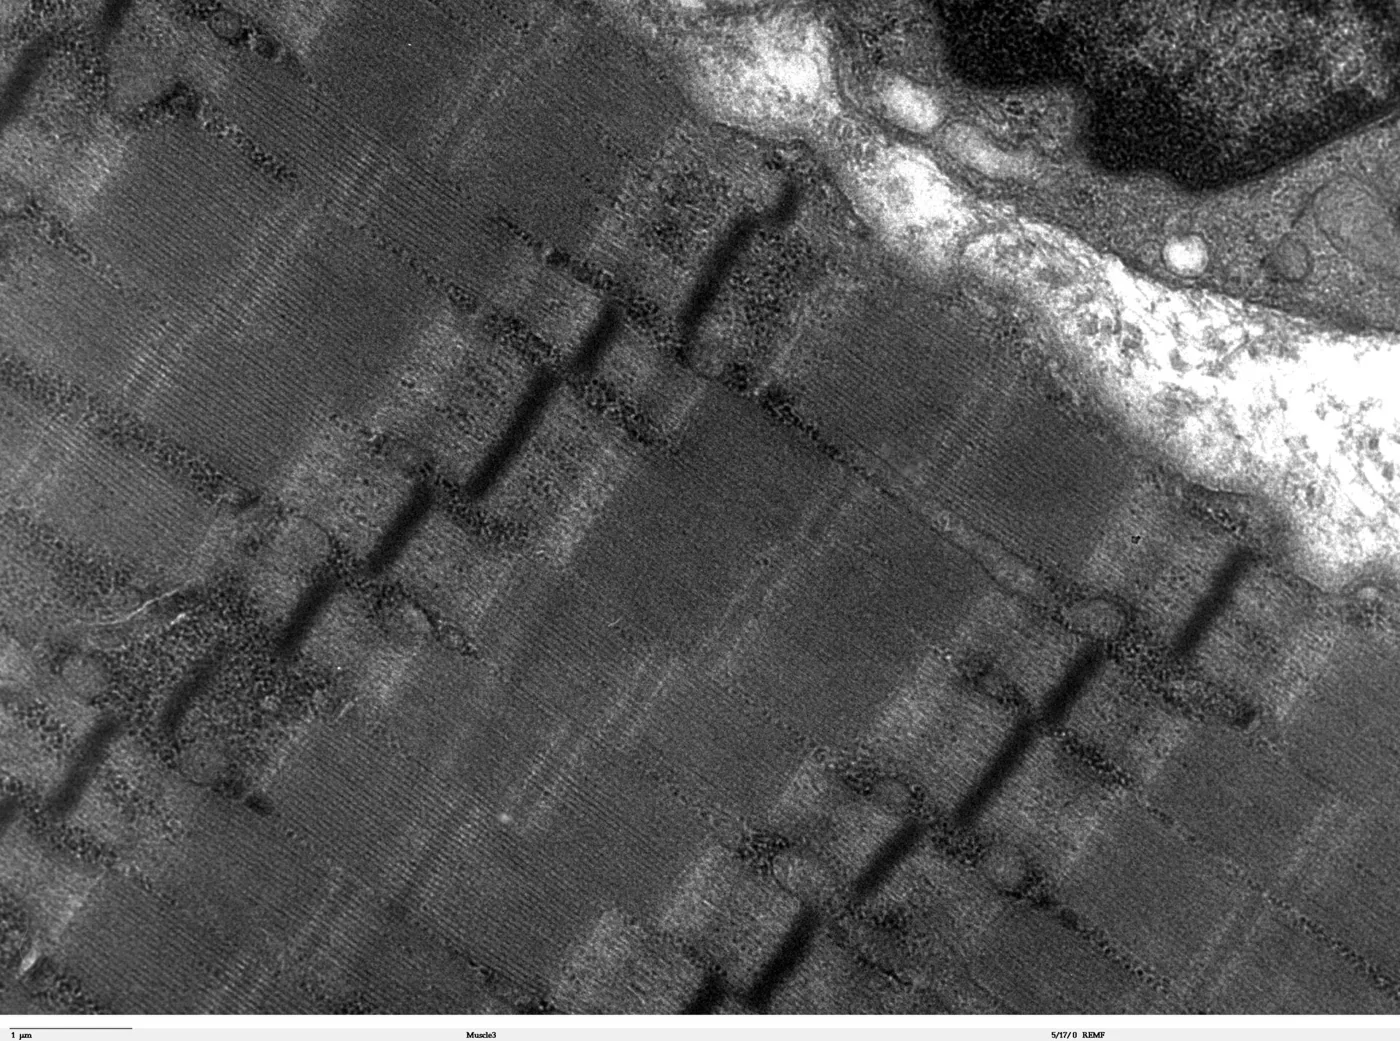
Tipos de fibras: propiedades que suelen agruparse
En músculo esquelético humano se utilizan habitualmente las categorías I, IIa y IIx, relacionadas con isoformas de las cadenas pesadas de miosina. Las fibras tipo I muestran, en términos generales, características contráctiles más lentas y alta capacidad oxidativa. Las IIa y IIx poseen propiedades rápidas, con diferencias de metabolismo y fatigabilidad. Estas categorías describen tendencias y rasgos medibles; no significan que todas las fibras de una categoría sean idénticas. [1, pp. 417–425; 2, pp. 374–382]
También pueden observarse fibras híbridas que expresan más de una isoforma. La clasificación mediante proteínas contráctiles no coincide perfectamente con toda clasificación metabólica, porque capacidad oxidativa, tamaño y organización intracelular pueden modificarse de forma parcialmente independiente. Además, parte de la terminología procede de investigaciones en otros mamíferos. La fibra IIb de algunos modelos animales no debe intercambiarse sin aclaración con la IIx utilizada para músculo humano. Esas diferencias importan cuando se presentan ilustraciones o se trasladan resultados de laboratorio a estudiantes: una nomenclatura semejante no demuestra que organismo, tejido y respuesta sean equivalentes.
Rapidez y fatigabilidad requieren más de una explicación
La velocidad de una respuesta contráctil se relaciona con propiedades de miosina y con regulación del calcio, entre otros componentes. La capacidad de sostenerla depende también de mitocondrias, enzimas, disponibilidad de sustratos y aporte de oxígeno. Las fibras tipo I suelen poseer rasgos que favorecen actividad oxidativa sostenida; las rápidas pueden contribuir de forma importante a altas demandas de fuerza y potencia. Pero ninguna fibra vive aislada del suministro sanguíneo o del estado de la persona. [1, pp. 419–422; 3]
Decir que una fibra es oxidativa no implica que utilice exclusivamente una vía energética. La resíntesis de ATP mantiene vías integradas cuya contribución varía con intensidad, duración y otras condiciones. De manera similar, fatigable no quiere decir inútil después de unos segundos en cualquier actividad. La respuesta depende de la tarea y de cómo se haya medido. El metabolismo muscular es adaptable; las diferencias de partida no anulan sus cambios. Por ello, la interpretación del rendimiento debe relacionar propiedades celulares con demandas del movimiento, en lugar de explicar toda resistencia mediante una proporción fija de fibras.
La unidad motora conecta propiedades neurales y musculares
Una motoneurona alfa y las fibras que inerva constituyen una unidad motora. El número de fibras, su distribución y sus propiedades varían entre unidades y músculos. Esta organización permite que una señal neural influya sobre un conjunto de fibras, mientras otras unidades participan según la demanda. No se recluta directamente una categoría de fibras como quien selecciona un botón: el sistema nervioso activa motoneuronas, y esas descargas producen respuestas en las fibras asociadas. [2, pp. 396–399; 4]
La fuerza del músculo puede cambiar mediante incorporación de unidades y modificación de su frecuencia de descarga. También influyen propiedades contráctiles, longitud, velocidad y estado de fatiga. Una frecuencia mayor puede favorecer sumación de respuestas dentro de determinadas condiciones; no significa que el potencial de acción individual se vuelva proporcionalmente más grande. Esta distinción ayuda a comprender el control motor. El músculo recibe una actividad organizada y la transforma en fuerza, pero la relación entre señales y resultado no es una regla lineal única válida para cualquier ejercicio.
El principio del tamaño y su contexto fisiológico
El principio del tamaño describe una tendencia de reclutamiento: bajo una entrada excitadora compartida, las motoneuronas de menor umbral suelen activarse antes que las de umbral mayor. Al crecer la demanda pueden incorporarse unidades adicionales. La base incluye propiedades de las motoneuronas y la organización de la entrada que reciben. Es un principio relevante para comprender la graduación de fuerza, pero su aplicación requiere considerar la tarea y los grupos funcionales afectados. [1, pp. 422–423; 4]
Hug y colaboradores integran reclutamiento, entrada sináptica común y organización modular. Su revisión permite ir más allá de un esquema donde cada músculo contiene una fila universal de fibras que se activa del mismo modo en cualquier situación. La entrada neural puede distribuirse entre grupos funcionales que no coinciden exactamente con todo un músculo. De ahí que una descripción prudente conserve el principio y sus condiciones, sin convertir excepciones o dificultades de medición en una negación automática. Tampoco es correcto establecer porcentajes universales de fibras activas para caminar, correr o saltar solo a partir del nombre de la actividad.
La tarea modifica qué significa reclutar más
La exigencia muscular no depende únicamente del peso de un objeto. Importan la aceleración, la posición, el tiempo disponible, el brazo de momento y las acciones necesarias para estabilizar segmentos. Un movimiento rápido y una fuerza mantenida pueden exigir organizaciones distintas, incluso si parecen involucrar el mismo músculo. La contracción muscular cambia con longitud y velocidad; la salida neural necesita interpretarse en ese contexto. [1, pp. 411–423; 4]
Si una tarea se prolonga y aparece fatiga, mantener el mismo resultado puede requerir cambios de actividad neural y participación de unidades. Eso no significa que todas las fibras lentas se apaguen antes de activar rápidas. Las categorías participan dentro de una organización superpuesta y dependiente de demanda. Del mismo modo, controlar el descenso de una carga no permite afirmar que el principio del tamaño deje de existir en toda acción excéntrica. Las condiciones de activación, las propiedades mecánicas y la interpretación de registros requieren análisis específico. La utilidad del principio reside en orientar ese análisis, no en evitarlo mediante un dibujo simplificado.
Qué puede cambiar con el entrenamiento
El músculo puede modificar tamaño de fibras, contenido y función mitocondrial, proteínas metabólicas y características contráctiles. El tipo de estímulo influye en la remodelación, junto con experiencia previa, recuperación y características individuales. El entrenamiento de fuerza y el de resistencia aeróbica no generan únicamente cambios opuestos: comparten respuestas y pueden combinarse, aunque los resultados dependen de cómo se organicen las demandas. [1, pp. 424–447; 3]
La investigación describe transiciones entre perfiles rápidos y variaciones de fibras híbridas, además de cambios dentro de una categoría. No respalda una conversión ilimitada donde cualquier persona transforme todo su músculo en el tipo deseado con un método breve. Tampoco las fibras tipo I están excluidas de la posibilidad de aumentar tamaño. La hipertrofia depende de condiciones y tejido estudiado; atribuirla exclusivamente a una categoría es una simplificación. La revisión metabólica de Smith y colaboradores resulta útil precisamente porque analiza adaptación como remodelación compleja, donde estructura, regulación y capacidad energética se relacionan sin reducirse a un único marcador.
Lo que una prueba permite conocer y lo que deja fuera
La caracterización directa de fibras suele requerir muestras de tejido y análisis específicos. Una biopsia informa sobre una región y un momento de un músculo, no sobre todos los músculos del cuerpo ni toda su variabilidad interna. El resultado depende de métodos de clasificación, sitio de obtención y características de la muestra. Una prueba de salto o carrera mide una ejecución; no sustituye ese análisis celular. [2, pp. 374–382; 3]
Los registros de actividad eléctrica tampoco deben interpretarse como una fotografía transparente de todas las unidades activas. El método, la posición de electrodos, los tejidos y el procesamiento influyen en la señal. En consecuencia, no puede deducirse la proporción exacta de fibras de una persona por su apariencia, una sensación de esfuerzo o una sola prueba de campo. Este límite resulta especialmente importante en selección deportiva escolar. Las oportunidades de práctica y las habilidades aprendidas contribuyen al resultado observado; asignar un destino deportivo por una supuesta composición muscular puede confundir una interpretación biológica con una conclusión que los datos no sostienen.
| Indicador | Qué describe | Límite principal |
|---|---|---|
| Proteínas de una muestra muscular | Rasgos celulares de una región analizada. | No representa automáticamente todo el cuerpo. |
| Fuerza en una tarea | Resultado mecánico bajo condiciones definidas. | No revela una proporción exacta de fibras. |
| Salto o carrera | Desempeño integrado. | Intervienen técnica, decisiones y otros sistemas. |
| Actividad eléctrica | Información dependiente del registro neuromuscular. | No equivale directamente a fuerza ni a todas las fibras activas. |
Un ejemplo hipotético: misma persona, exigencias diferentes
Imaginemos una persona que sostiene una pelota ligera, realiza un pase y luego repite envíos durante un juego. La postura inicial exige producir fuerza para mantener la posición; el pase requiere generar un cambio de velocidad; la repetición añade una demanda de continuidad. Aunque se utilicen regiones musculares semejantes, el tiempo, la intensidad y la finalidad cambian. También participan apoyos, tronco y percepción del compañero.
El ejemplo no permite afirmar qué porcentaje de fibras I, IIa o IIx interviene. Sirve para reconocer por qué la actividad neural se ajusta a condiciones y por qué la fatiga puede modificar la ejecución. Si al final los envíos pierden precisión, sería insuficiente explicar el resultado como agotamiento de un único tipo de fibra. Puede haber cambios musculares, de coordinación, atención o decisión. El docente puede observar el patrón y ajustar condiciones, manteniendo separada esa observación de una medición fisiológica que no ha realizado. La interpretación conserva así la utilidad de las categorías celulares sin convertirlas en la explicación total de la conducta.
Una lectura integrada de fuerza, velocidad y resistencia
Las propiedades de las fibras ayudan a entender diferencias funcionales, pero trabajan dentro de un músculo organizado, con inervación, circulación y tejido conectivo. La fuerza que llega a una articulación también depende de geometría y coordinación. La velocidad de un gesto exige resolver una tarea; la resistencia se relaciona con sostenerla bajo determinadas condiciones. Ninguna de estas capacidades puede reducirse a un único porcentaje celular. [2, pp. 374–403; 3; 4]
Para interpretar un cambio conviene distinguir escala y resultado. Un músculo puede mostrar adaptaciones metabólicas sin una modificación visible de tamaño, y una prueba puede mejorar por aprendizaje sin que se haya estudiado la composición de fibras. Esta distinción permite formular preguntas más precisas sobre entrenamiento: qué exigencia se propone, qué respuesta se registra y qué explicación cuenta con evidencia. Los tipos de fibras y el reclutamiento ofrecen una base valiosa para responderlas, siempre que se conecten con la tarea real y con los límites de los métodos utilizados.
Bibliografía
- León Ariza, H. H. (2026). Fisiología del ejercicio: bases para la comprensión del rendimiento y el ejercicio físico para la salud. Universidad de La Sabana. Consultar fuente
- McArdle, W. D., Katch, F. I., y Katch, V. L. (2015). Fisiología del ejercicio: nutrición, rendimiento y salud (8.ª ed.). Wolters Kluwer Health España. ISBN 978-84-16004-70-6.
- Jonathon A. B. Smith; Kevin A. Murach; Kenneth A. Dyar; Juleen R. Zierath (2023). Exercise metabolism and adaptation in skeletal muscle. Nature Reviews Molecular Cell Biology, 24(9), 607-632. https://doi.org/10.1038/s41580-023-00606-x Consultar fuente
- Hug F, Avrillon S, Ibáñez J, Farina D. (2023). Common synaptic input, synergies and size principle: Control of spinal motor neurons for movement generation. The Journal of physiology, 601(1), 11-20. https://doi.org/10.1113/JP283698 Consultar fuente